Des plantes, des champignons et des bactéries, du potager à l’arbre de rue. L’eau, l’azote, les bactéries, et ce qu’un concepteur en fait.
Où nous en étions
Deux platanes plantés le même jour, dans la même rue. Cinq ans plus tard, l’un tient, l’autre sèche. La première partie a cherché la différence sous terre. On y a vu un poireau qui loue le chevelu d’un champignon au lieu de le fabriquer, un chou qui ne traite avec personne, et trois réseaux qui partagent le même sol sans se parler. On y a vu aussi que le froid et la sécheresse, en bloquant la décomposition, décident du circuit, que le sol garde la mémoire de ses hivers, et que le champignon porte de l’eau jusqu’à la racine.
Tout cela ramenait à une bande de sol, ni noyée en février ni sèche en mai. C’est là que le réseau se replie quand l’hiver le casse en surface et que le printemps sèche trop tôt pour qu’il s’y refasse. Le compactage de chantier suivi d’un hiver saturé y fait plus de dégâts que la canicule, et deux trous à la bêche suffisent à la lire.
C’est de là que l’on repart, avec ce que l’on verse dans ce sol et ce qui y vit sans se montrer, avant d’en tirer des clauses et un plan. Si vous cherchez par où entrer selon ce que vous plantez, le guide est au début de la première partie.
L’eau que l’on verse, et ce qu’elle transporte
On raisonne l’arrosage en litres et en fréquence. Presque jamais en qualité. Or l’eau que l’on verse n’est pas neutre pour le monde souterrain, et les dangers ne sont pas ceux que l’on croit. Elle tombe d’abord sur les vingt centimètres où le mycélium est le plus dense, ceux-là mêmes que l’hiver noie et que le printemps assèche.
Commençons par l’accusation la plus répandue, celle du chlore qui stériliserait le sol. Elle ne tient pas. Une équipe a irrigué en continu pendant quatorze jours un dispositif sol et plante avec une eau faiblement chlorée, puis a séquencé toute la communauté microbienne, dans la rhizosphère, cette mince couche de sol au contact des racines, et hors rhizosphère. Aucun effet durable sur la diversité ni sur la composition. Les fonctions métaboliques ont bougé légèrement, puis sont revenues à leur état initial. Le sol est un milieu tampon, il amortit ce qu’on lui verse, et sa matière organique consomme un oxydant faible presque instantanément.
Le vrai danger est ailleurs, et il est plus retors. Le chlore ne tue pas la biologie, il réagit avec la matière organique. Un travail italien a suivi des laitues cultivées en pots sur deux sols différents, irriguées avec des eaux plus ou moins chlorées. Il se forme des molécules où le chlore vient se fixer sur la matière organique, et on les retrouve ensuite partout où la plante a poussé, sol, racines, feuilles, en proportion du chlore versé. Dans le sol sableux, l’accumulation reste insignifiante. Dans le sol limono-argileux, la charge du sol atteint jusqu’à trois cents pour cent de celle du sol témoin. Les auteurs relient explicitement le phénomène à la teneur en matière organique du sol. Et il y a un effet de mémoire : une fois ces composés accumulés, ils continuent de passer dans les cultures suivantes même arrosées à l’eau ordinaire. Avec seulement zéro virgule deux milligramme de chlore résiduel par litre, les feuilles portaient quatre cents à sept cents microgrammes de chlore organique par kilo, contre rien de détectable dans les feuilles témoins. Les chloramines, ces formes stables du chlore combiné, produisent des effets comparables au chlore libre.
Plus le sol est riche en matière organique, plus il fabrique de ces composés à partir du chlore que l’on verse. Autrement dit, plus on travaille bien son sol, plus l’eau chlorée coûte cher. C’est exactement l’inverse de l’intuition, et c’est le genre de résultat qui devrait faire réfléchir avant d’arroser un potager au tuyau. Ce que ces composés font à la plante et à celui qui la mange n’est pas établi ; on n’a simplement aucune raison de vouloir les fabriquer.
Il faut d’ailleurs savoir que le sol chlore sa propre matière organique, tout seul, en permanence. Des mesures faites sur six sols tempérés français, avec un traceur isotopique, montrent que les taux de chloration les plus élevés se trouvent dans les couches d’humus forestier, et parmi les humus, dans le mull, c’est-à-dire celui dont l’activité biologique est la plus intense. Les sols cultivés sont les plus bas. Et les taux suivent l’humidité du sol. Le chlore organique n’est donc pas un polluant exotique, c’est un produit du métabolisme souterrain, et ce que l’on ajoute par l’eau vient se greffer sur un cycle qui tourne déjà.
Sur les doses, quelques repères. Une eau de ville porte couramment entre zéro virgule deux et un milligramme de chlore libre par litre. Les recommandations pour traiter un réseau d’irrigation visent un à deux milligrammes au dernier goutteur, avec une injection initiale de cinq à six, et les chocs d’entretien annuel dépassent cinquante. Deux consignes sortent de cette littérature technique et méritent d’être connues. Ne jamais injecter du chlore en même temps qu’un engrais, car le chlore réagit avec l’ammonium et forme des chloramines. Et se souvenir de ceci, qui se vérifie chez soi : remplissez un arrosoir le soir, à l’air libre, et arrosez le lendemain, l’essentiel du chlore libre est parti tout seul, et un jour de plus finit le travail. Si la commune traite à la chloramine, il est encore là, et il y sera la semaine prochaine. Votre distributeur d’eau vous dira lequel des deux il emploie.
Le cas où la question devient sérieuse est celui des milieux sans sol. Un substrat de pépinière, un mur végétal en circuit fermé, une culture hors sol ne disposent pas du pouvoir tampon d’une terre. L’oxydant y arrive intact au contact des racines et des biofilms. Je le pose comme une déduction et non comme un résultat publié, car je n’ai pas trouvé de travail qui l’ait mesuré proprement : dans ces systèmes, l’eau de ville mérite d’être traitée comme un intrant, pas comme une commodité.
Une confusion encore, entre le chlore et le chlorure. Le premier est un désinfectant qui disparaît en un jour ou deux sous sa forme libre, et qui persiste sous forme de chloramine. Le second est un ion stable qui s’accumule, saison après saison, partout où l’on irrigue plus que l’on ne lessive. C’est le problème du sud et des terres irriguées, pas celui d’un jardin normand. C’est aussi celui des arbres de rue, où le sel de déneigement dégrade mesurablement les performances des sujets plantés en fosses structurales, ces fosses de rue remplies d’un mélange de pierres et de terre qui porte la chaussée. Nos deux platanes du début en sont sans doute. Et sur ce terrain, la symbiose n’est pas seulement la victime, elle est aussi le remède : la littérature sur la tolérance au sel montre que la colonisation mycorhizienne limite l’accumulation de sodium dans les parties aériennes et améliore l’équilibre ionique de la plante. Un arbre de rue bien mycorhizé encaisse probablement mieux le sel qu’un arbre débranché.
En pratique, cela se ramène à peu de chose. Sur un sol riche en matière organique, préférer l’eau de pluie, ou laisser reposer l’eau de ville quand elle est chlorée au chlore libre. Ne jamais mélanger chlore et engrais. Traiter les milieux sans tampon pour ce qu’ils sont, substrat de toiture, bac, mur végétalisé, pépinière. Une fosse d’arbre de rue est un milieu peu tamponné tant qu’elle reste pauvre en matière organique, et elle bascule dans l’autre problème, celui des composés chlorés, dès qu’on l’enrichit. Et au sud, surveiller le chlorure et le sodium, qui s’accumulent, plutôt que le chlore, qui passe.
L’azote que personne n’a décidé, et la résistance que l’on perd
L’eau ne transporte pas que du chlore. Elle transporte aussi de l’azote, et celui-là ne figure sur aucune facture.
Une eau d’arrosage n’est pas neutre en azote. Un forage, un puits, une eau de réseau prélevée dans un secteur agricole en contiennent, parfois beaucoup. Faisons l’ordre de grandeur, il est parlant. Avec une eau à la limite réglementaire de cinquante milligrammes de nitrate par litre, trois cents millimètres d’irrigation dans la saison apportent environ trente-quatre kilos d’azote à l’hectare, soit un peu plus de trois grammes au mètre carré. Personne n’a décidé cette fertilisation, personne ne l’a portée au plan de fumure, et elle est délivrée en petites doses régulières, directement dans la zone racinaire, c’est-à-dire de la manière la plus efficace qui soit pour éteindre une symbiose. À cette concentration, ce n’est pas assez pour arrêter la nodulation d’une légumineuse, les essais situent ce seuil nettement plus haut, mais c’est assez pour la freiner et pour retarder l’installation d’une symbiose que l’on croyait gratuite. Un forage plus chargé, et il y en a, fait le reste.
L’azote arrive aussi par l’air, et à cette échelle le phénomène ne se discute plus. En croisant les dépôts azotés avec l’inventaire forestier des États-Unis, Averill et ses coauteurs ont montré en 2018 que la pollution azotée s’accompagne d’un recul des arbres ectotrophes au profit des arbres arbusculaires. Les effets sur la démographie des deux groupes sont de sens contraires, et le tout est corrélé à des stocks de carbone du sol plus faibles. Fertiliser à l’échelle d’un continent revient donc à changer le circuit dominant d’une forêt, et à lui faire perdre du carbone en même temps. C’est le même mouvement que celui que l’on provoque dans une fosse d’arbre avec un sac d’engrais, mais à l’échelle où il devient irréversible.
Maintenant, ce que l’on perd, et c’est le point que la plupart des conseils de fertilisation ignorent complètement. Quand on remplace la symbiose par un apport, on ne remplace pas seulement un service de nutrition. On démonte un système immunitaire.
Une plante mycorhizée est une plante dont les défenses sont amorcées. Le phénomène porte un nom, la résistance induite par la mycorhize. Une plante mycorhizée ne se défend pas mieux, elle se défend plus vite. Ses défenses sont déjà armées quand l’attaque arrive, le signal part de la racine et monte jusqu’aux feuilles, et cela vaut aussi bien contre un champignon pathogène que contre un nématode à galles ou un insecte broyeur, moins sûrement contre un puceron. Une plante branchée n’est pas seulement mieux nourrie. Elle est prévenue.
Cameron et ses coauteurs proposent que cette résistance ne soit pas l’œuvre du champignon seul, mais l’effet cumulé du champignon et des bactéries de la mycorhizosphère, ce sol qui entoure la racine mycorhizée et ses hyphes. Ces bactéries déclenchent de leur côté la résistance systémique induite, l’équivalent bactérien du même amorçage. Autrement dit, le champignon construit un voisinage, et c’est le voisinage entier qui protège la plante. On ne l’achète pas en sac.
De là se tire une règle simple sur les apports, quels qu’ils soient, engrais soluble, solution foliaire, biostimulant. Tout ce qui donne gratuitement à la plante ce qu’elle aurait acheté réduit son investissement dans l’alliance. Et l’alliance ne portait pas seulement la nutrition, elle portait la défense. On ne fertilise donc pas pour faire pousser, on corrige une carence démontrée. L’ordre des opérations compte autant que les doses : rétablir le réseau, mesurer ce qui manque encore, et n’apporter que cela.
Une seule ligne d’analyse nouvelle entre au marché, et elle ne coûte presque rien : l’analyse de l’eau d’arrosage avant de dimensionner l’irrigation, la teneur en nitrate se lisant comme une fumure non déclarée. Les autres clauses attendent au chapitre de conception.
Une limite, pour finir, car elle est réelle. La résistance induite par la mycorhize est documentée surtout sur des plantes herbacées et en conditions contrôlées. La transposer à un arbre de rue est un raisonnement, pas une démonstration. Mais le raisonnement va dans le même sens que tout le reste de ce texte, et il coûte moins cher à suivre qu’à ignorer.
Le réseau est un marché, pas une coopérative
Voici l’apport que je considère comme le plus utile de toute cette littérature, et celui que l’on entend le moins. Il prolonge ce que le poireau et la graminée nous ont appris dans la première partie : les plantes ne sont pas au même tarif, et l’on va voir que les champignons non plus.
On imagine volontiers le champignon comme un serviteur dévoué et le réseau comme une caisse de solidarité. Les mesures disent autre chose. Kiers et son équipe ont montré en 2011 que l’échange est régulé par des récompenses réciproques, la plante allouant davantage de carbone aux champignons qui lui livrent le plus de phosphore, et le champignon livrant davantage de phosphore aux racines qui payent le mieux. Whiteside et ses collègues sont allés plus loin en 2019, en marquant le phosphore avec des nanoparticules fluorescentes pour le suivre dans le réseau. Le champignon, placé entre une zone riche et une zone pauvre, déplace activement son phosphore de la zone riche vers la zone pauvre. Il ne partage pas, il stocke où le prix est bon et vend où la demande est forte.
Walder et son équipe, en 2012, ont relié un lin et un sorgho par un même réseau, puis ont tracé les échanges par isotopes. Le sorgho a fourni environ 70 pour cent du carbone versé au champignon. Avec l’une des deux espèces fongiques testées, le lin a récupéré de 80 à 94 pour cent du phosphore et de l’azote distribués par le réseau. Le gros payeur touchait le reste. Avec l’autre espèce fongique, le partage devenait à peu près équitable.
Lisez cela deux fois. Dans une association de plantes, ce n’est pas seulement le couple de plantes qui décide du résultat, c’est l’espèce de champignon présente dans votre sol. Le même couple, avec un autre partenaire fongique, donne un partage inverse.
Un travail publié en octobre 2025 le confirme dans un autre décor. Reliant trois orchidées terrestres vertes à des pins par un même champignon, les auteurs trouvent des transferts de carbone et d’azote dans les deux sens, mais avec des sens nets différents selon l’espèce d’orchidée, trois configurations distinctes pour l’azote sur trois espèces voisines. Le réseau n’a pas de politique. Il a des couples.
Cela explique une bonne partie des associations qui marchent chez le voisin et pas chez vous, et cela devrait rendre modeste quiconque publie des tableaux d’associations valables partout. Cela explique aussi pourquoi la diversité fongique du sol vaut mieux qu’une souche unique achetée en sac.
La plante relais
Voici maintenant la règle qui coûte le plus cher quand on l’oublie. Le champignon mycorhizien est un biotrophe obligatoire. Il ne vit que sur racine vivante. Il ne mange que du vivant. Une graine attend le printemps dans la terre, lui n’attend pas, il décline. Privé d’hôte, il survit un temps sous forme de spores et de fragments d’hyphes, en nombre décroissant, et cette réserve s’épuise.
Les agronomes australiens ont donné un nom à la conséquence et l’ont documentée dès 1987. Ils l’appellent le trouble de la jachère longue. Après une ou deux saisons de sol maintenu nu et propre, la culture suivante lève mal, reste naine, et montre une double carence, en phosphore et en zinc, alors que l’analyse de terre annonce des teneurs correctes. Les éléments sont là. Le transporteur a disparu. Sur vertisol, une argile gonflante, un coton semé dans un sol dont on avait supprimé les champignons est resté extrêmement chétif quand le même coton, en sol non traité, avait 48 pour cent de son système racinaire colonisé. Le même phénomène a été décrit après de longues inondations, pour la même raison, l’absence prolongée d’hôte vivant.
D’où la pièce maîtresse de toute association raisonnée, la plante relais. Une plante hôte vivante, présente toute l’année, dont le seul travail est de tenir le réseau allumé entre deux cultures. Un trèfle blanc, une luzerne, un fraisier, une touffe de graminée, une phacélie dans le mélange. La méta-analyse citée dans la première partie est nette sur ce point, ce sont les couverts de légumineuses qui donnent les meilleures colonisations.
Dans un verger, la bande enherbée n’est pas un ornement ni une commodité de tonte, c’est la centrale électrique du système. Dans un potager, un rang de trèfle laissé en place l’hiver vaut mieux qu’un sol propre.
Et il y a un réservoir que l’on oublie presque toujours, la haie. Une haie ancienne, jamais travaillée, jamais fertilisée, contient sous elle une population mycorhizienne d’une richesse que rien ne remplace. C’est la banque du terrain. On y puise, on n’y verse rien.
Le phosphore du nodule, et le taxi du rhizobium
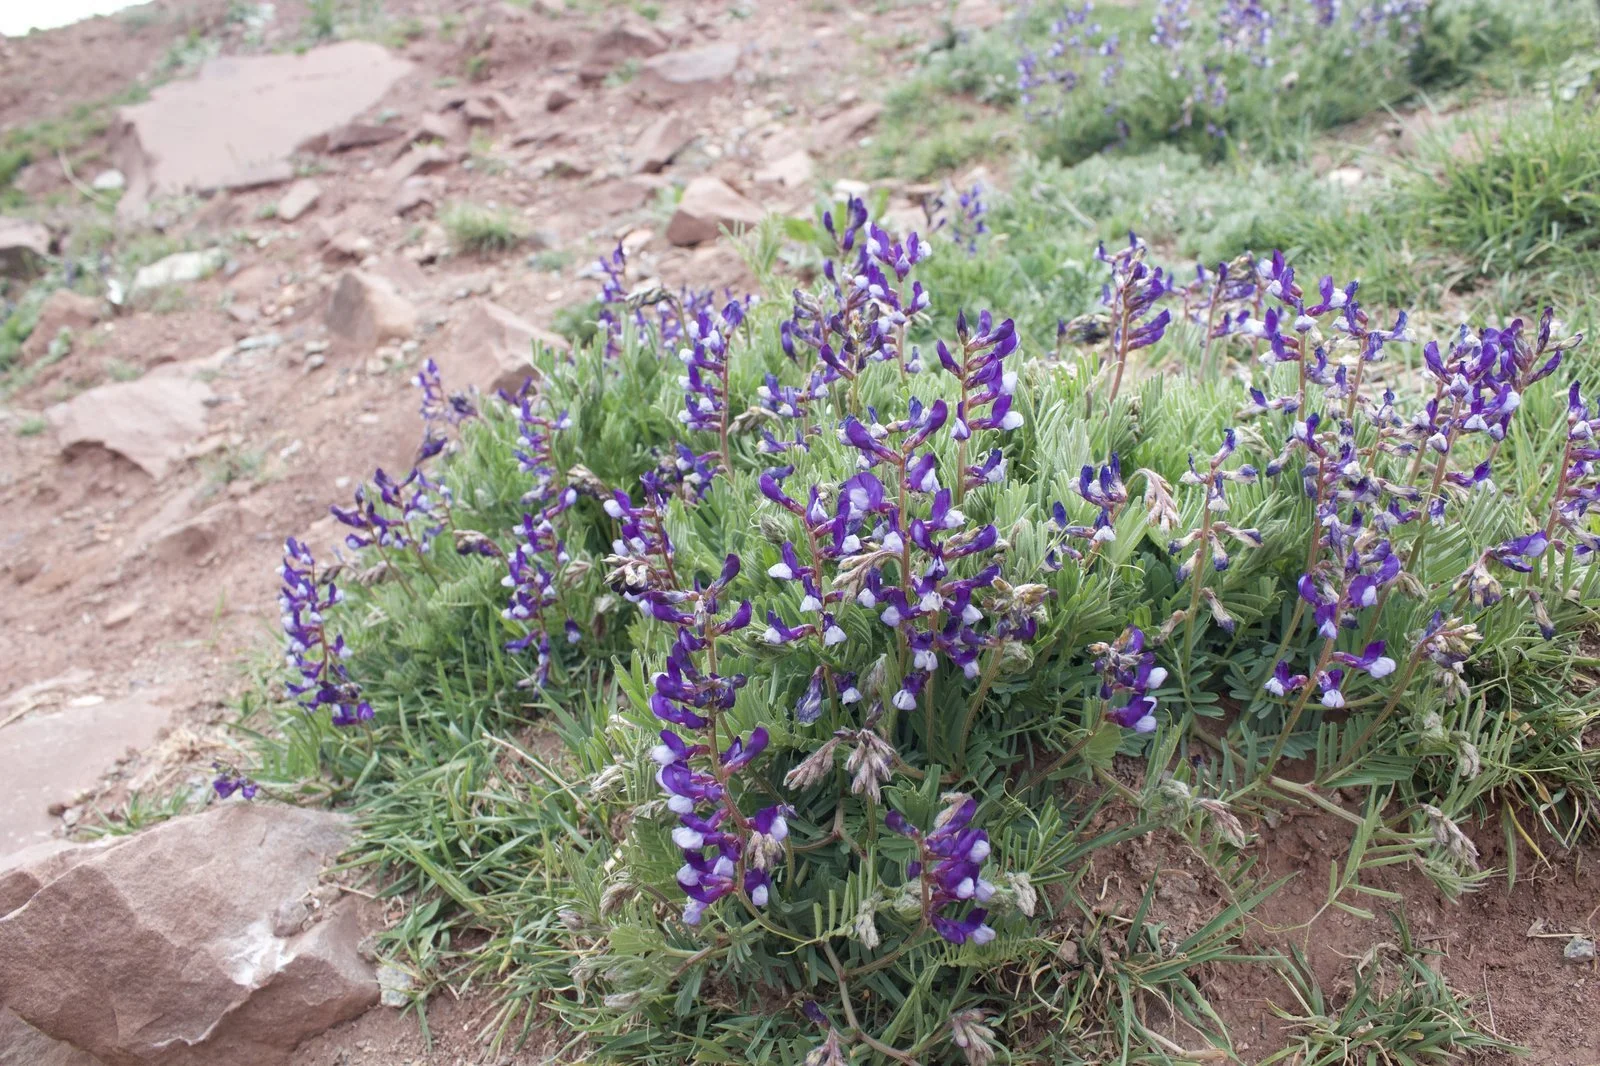
Haut Atlas. Une légumineuse en coussin installée dans un éboulis, à trente centimètres du caillou nu. C’est là, en sol minéral, sec et alcalin, que la fixation symbiotique pèse le plus lourd.
On a vu dans la première partie que les sols arides et alcalins misent d’eux-mêmes sur la carte des fixateurs. Comprenons ce qui fait tourner ce nodule. On associe une légumineuse à une plante gourmande pour l’azote qu’elle apporte, et c’est vrai, mais c’est incomplet.
La fixation de l’azote atmosphérique est l’opération la plus chère de toute la biologie végétale. Rompre la triple liaison de la molécule d’azote demande à la nitrogénase, l’enzyme qui fait ce travail, seize molécules d’ATP par molécule d’azote réduite, dont un quart part dans l’hydrogène perdu au passage. Or l’ATP, cette monnaie qui paie toute dépense d’énergie dans la cellule, contient du phosphore. Un nodule, qui en fait tourner autant, doit donc en tenir un stock élevé : c’est un organe à très forte concentration en phosphore. Une légumineuse mal pourvue en phosphore fixe mal, quelle que soit la qualité de son rhizobium, la bactérie du nodule. L’expérience le confirme, la mycorhize stimule la fixation biologique d’azote chez la luzerne et chez Medicago truncatula précisément en améliorant l’acquisition du phosphore. Avec une condition qu’il faut donner en même temps, le bénéfice n’existe que tant que le phosphore est limitant. Au-delà de huit à dix milligrammes de phosphore extractible à l’eau par kilo, il disparaît et les deux symbioses se mettent à se disputer le carbone de la plante.
Il y a mieux, et c’est récent. On croyait le champignon simple fournisseur de minéraux. On a montré en 2021 que ses hyphes transportent des bactéries solubilisatrices de phosphore jusqu’aux poches de phosphore organique qu’il ne sait pas exploiter seul. Puis, en 2024, qu’ils rendent le même service aux rhizobiums. Dans un sol où la bactérie se déplace mal, elle circule le long des hyphes et se nourrit de ce qu’elles suintent en chemin, leurs exsudats sucrés. Elle atteint ainsi des racines de légumineuses éloignées et les nodule. Mieux encore, la présence de la bactérie stimule le flux dans l’hyphe et augmente l’exsudation, ce qui entretient le trafic.
Le champignon n’est donc pas seulement le fournisseur de phosphore du nodule. Il est le taxi qui amène la bactérie jusqu’à la racine. Associer une légumineuse à une plante gourmande, c’est mettre en marche cette chaîne complète, et non un simple échange d’azote.
Il y a une suite à cette histoire, et je la sépare volontairement de ce qui précède, parce qu’elle n’a pas le même statut de preuve. C’est une piste, pas un résultat, et la règle de conduite qui ferme ce chapitre n’en dépend pas. Si le détail chimique ne vous intéresse pas, sautez les paragraphes qui suivent et retrouvez-moi à la dernière ligne.
Le nodule libère de l’hydrogène, et il ne peut pas faire autrement : la nitrogénase produit obligatoirement du dihydrogène en réduisant l’azote. La stœchiométrie de la réaction, c’est-à-dire le compte exact de ce qui entre et de ce qui sort, en impose au minimum le quart des électrons. La mesure sur plantes entières donne bien pire : chez la plupart des symbiotes, quarante à soixante pour cent seulement du flux d’électrons destiné à l’azote l’atteint réellement. Le reste part en gaz.
Ce gaz n’est pas exotique. Les hydrogénases sont réparties dans des dizaines d’embranchements bactériens et archéens, et les sols sont le principal puits d’hydrogène atmosphérique de la planète. L’effet de l’hydrogène des nodules sur la croissance des plantes voisines porte un nom dans la littérature depuis le début des années deux mille, la fertilisation par l’hydrogène. Un travail de 2003 a exposé des sols n’ayant pas porté de légumineuse à un flux d’hydrogène imitant celui d’un nodule, puis y a semé du blé, du colza, de l’orge et un soja non nodulant. Les poids secs étaient supérieurs de quinze à quarante-huit pour cent par rapport aux mêmes sols traités à l’air. Et l’on sait que ce gaz coûte à la plante cinq à six pour cent de sa photosynthèse nette, ce qui est beaucoup pour un déchet.
Il faut aussitôt dire l’autre côté. Un travail de 2025 a imprégné un sol d’hydrogène pendant deux mois avant d’y semer de la vesce, sans nouvelle exposition pendant la culture. Non seulement le gain attendu sur la partie aérienne ne s’est pas produit, mais la biomasse racinaire a diminué. Les auteurs concluent que la fertilisation par l’hydrogène n’est pas universelle et qu’elle dépend de conditions particulières qui restent à identifier.
Ce que j’ajoute à cela est une hypothèse de travail et rien de plus : le maillage mycorhizien ne capte pas l’hydrogène, le champignon n’a aucune enzyme pour cela, mais il loge, nourrit, transporte et positionne les bactéries qui le captent. Personne n’a testé si un réseau intact change quelque chose à cette affaire. Je consacre à cette question un article entier, avec ses preuves, ses antériorités, ses résultats contraires et sa condition d’abandon.
Voici la dernière ligne promise. La règle de conduite que je tire de ce chapitre, elle, est publiable indépendamment de l’hypothèse, puisqu’elle se justifie déjà par tout ce qui précède : carbone continu, structure ouverte, eau légère et permanente plutôt que copieuse et espacée, azote minéral bas. Elle vaut d’abord parce qu’elle fait pousser.
Le champignon ne sait rien faire tout seul non plus
Nous avons décrit jusqu’ici un fournisseur exemplaire. Ce fournisseur exemplaire est illettré en chimie.
Le champignon arbusculaire est un explorateur et un transporteur remarquable. Ce n’est pas un chimiste. Le séquençage du génome de Rhizophagus irregularis, publié en 2013, a montré qu’il lui manque les gènes codant les enzymes capables d’attaquer les parois végétales, ce qui cadre avec sa biotrophie obligatoire, et qu’il ne sécrète pas les phosphatases qui ouvriraient le phosphore organique. Traduit en langage de terrain : il ne sait pas casser ce qui est enfermé. Devant une phytine, cette forme de phosphore stockée dans les graines et très abondante dans les sols, il est aussi démuni qu’un poireau devant un sol sec. Il faut que quelqu’un casse la molécule pour lui.
Ce quelqu’un est une bactérie. Et le champignon ne l’attend pas, il la recrute, il la paye et il la transporte.
Les hyphes exsudent du sucre, notamment du fructose. On a montré en 2018 que ce fructose n’agit pas seulement comme nourriture. Il déclenche chez une bactérie solubilisatrice de phosphore l’expression des gènes de phosphatase et modifie son système de sécrétion de protéines, donc la quantité d’enzyme libérée dans le milieu. L’activité phosphatase augmente, la phytine est minéralisée, et le phosphore inorganique ainsi libéré est capté par le champignon. Le sucre, ici, n’est pas un salaire, c’est un ordre de mission.
Le transport se démontre ainsi. On sépare deux compartiments par un vide d’air de sept millimètres et demi, infranchissable pour une bactérie. On dépose la bactérie d’un côté, une réserve de phosphore organique de l’autre. Sans champignon, rien ne se passe, jamais. Avec des hyphes tendus au-dessus du vide, la bactérie est de l’autre côté en une semaine. Les contrôles achèvent de le prouver. Un fil de nylon du même diamètre, tendu au même endroit, ne fait pas l’affaire : il ne porte pas un film d’eau assez épais. Posé au fond, donc mieux mouillé, il ne marche toujours pas, sauf si on l’enduit de glucose. Enfin, une bactérie dépourvue de flagelle, ce fouet qui la fait nager, n’arrive jamais à destination, même avec les hyphes en place.
Il faut donc trois choses simultanément, et c’est la définition même d’un pacte. Une route, le film d’eau qui entoure l’hyphe. Un carburant, les exsudats sucrés que le champignon libère le long du trajet. Et un passager qui rame, la bactérie qui doit nager par elle-même. Retirez l’un des trois, il ne se passe rien.
Dans ce dispositif, le champignon seul ne minéralise rien, la bactérie seule ne minéralise rien, et les deux ensemble font disparaître 67 pour cent de la phytine. En sol réel, sous maïs, la même expérience donne ceci : aucune bactérie détectable dans la poche de phosphore organique quand le champignon est absent, plus de dix millions de bactéries par gramme quand il est présent. Et la boucle se referme sur elle-même, puisque le phosphore récupéré finance plus d’hyphes, donc plus d’exsudats, donc plus de bactéries, donc plus de minéralisation.
Tout cela ne se passe ni dans le sol en vrac ni dans la rhizosphère, mais dans une zone qui porte désormais son propre nom, l’hyphosphère. Les communautés bactériennes qui s’installent sur les hyphes hors des racines sont reproductibles d’un sol à l’autre, avec des groupes systématiquement enrichis, et elles se mettent en place en quatorze jours. Deux espèces de champignon mises dans le même sol ne recrutent pas la même équipe bactérienne, chacune fait sa propre sélection. Nous retrouvons ici, à l’étage bactérien, ce que nous avions vu avec le lin et le sorgho. Le partenaire fongique présent chez vous ne décide pas seulement du partage entre plantes, il décide aussi du personnel recruté dans le sol.
Pour l’azote, il faut même un troisième règne. Le champignon ne sait pas davantage ouvrir la chitine, cette molécule azotée qui constitue les carapaces d’insectes et les parois des autres champignons, et qui représente un stock d’azote considérable. Un travail publié en 2022 a reconstitué la chaîne complète en conditions contrôlées, avec de la chitine marquée. Le champignon obtient beaucoup d’azote lorsqu’un Paenibacillus est présent dans son hyphosphère, mais une part de cet azote reste enfermée dans les bactéries elles-mêmes. Il faut alors un protiste, une amibe sociale, qui vienne brouter les bactéries pour libérer l’azote dans le milieu. Trois règnes du vivant, plantes mises à part, pour faire circuler un atome d’azote jusqu’à une racine.
Et il y a des bactéries à l’intérieur du champignon. C’est le dernier étage de l’emboîtement, et le plus spectaculaire. Certaines espèces de Gigaspora hébergent dans leur cytoplasme une bactérie obligatoire, Candidatus Glomeribacter gigasporarum, au génome réduit à environ deux millions de paires de bases, incapable de vivre ailleurs. Quand on débarrasse le champignon de son locataire, il perd en vigueur et en potentiel bioénergétique. La bactérie améliore par ailleurs les réponses antioxydantes du champignon et, de proche en proche, celles de la plante hôte. Une bactérie dans un champignon dans une racine, avec les bactéries de l’hyphosphère autour. Le pacte se joue à quatre.
Chez les arbres ectotrophes, la même histoire se joue avec d’autres acteurs. On a découvert dès les années quatre-vingt-dix, comme le résume Frey-Klett en 2007, que certaines bactéries du sol favorisent la formation même de l’ectomycorhize. On les appelle depuis les bactéries auxiliaires de la mycorhization. Une souche de Pseudomonas fluorescens augmente ainsi le nombre de mycorhizes formées entre le douglas et le champignon Laccaria bicolor. Le mécanisme n’est pas anodin : des mutants privés de leur système de sécrétion de type trois, c’est-à-dire de l’appareil moléculaire qui injecte des protéines dans une cellule voisine, perdent toute capacité à favoriser la symbiose. Il y a donc dialogue moléculaire actif, pas simple voisinage. Des échanges de vitamines, la thiamine notamment, complètent le tableau.
Ces coopérations ne se déclenchent que sous contrainte. Quand le phosphore soluble abonde, elles n’ont plus lieu d’être et l’on observe simplement des organismes qui se tolèrent. C’est le même interdit que plus haut, retrouvé un cran plus bas : un sol richement fertilisé n’est pas un sol nourri, c’est un sol où plus personne n’a de raison de traiter avec personne.
Trois conséquences pratiques en découlent pour qui conçoit et qui plante.
D’abord une asymétrie qu’il faut connaître avant d’acheter quoi que ce soit. Les bactéries se cultivent, se conditionnent et se réintroduisent : l’inoculation des légumineuses par des rhizobiums a un siècle de recul agronomique et elle fonctionne. Le champignon mycorhizien, lui, ne se cultive pas hors d’une racine vivante, et quatre-vingt-quatre pour cent des essais de produits du commerce ne colonisent rien ou presque. On peut donc réintroduire des bactéries. On ne peut pas fabriquer un réseau en flacon, on ne peut que le transplanter avec sa terre ou lui rendre les conditions de son retour.
Ensuite, une bactérie sans habitat ne tient pas longtemps. Elle a besoin du film d’eau, de la porosité et du carbone continu que la plante et le champignon fabriquent. C’est exactement la fonction d’un biochar, ce charbon végétal poreux, chargé avant enfouissement : il n’apporte pas une souche, il apporte un logement.
Enfin, la formule qui résume l’ensemble et que je garderai pour mes rapports. La plante paye le champignon en sucre, le champignon paye la bactérie en sucre, et la bactérie ouvre la serrure chimique qu’aucun des deux ne sait ouvrir seul. Si l’azote reste coincé dans la bactérie, il faudra même un protiste pour venir la manger. Dans cette chaîne, personne ne travaille gratuitement, ni tout seul.
C’est pour cela que le titre de cet article parle de pactes au pluriel. Il n’y a pas une alliance entre une plante et son champignon, il y en a une cascade, emboîtée, négociée à chaque étage, et dont la conduite du sol décide si elle se met en place ou non.
Ce qui casse le réseau
On peut retourner la question et se demander ce qui débranche une plante qui demandait à être branchée.
Le phosphore soluble en excès. C’est le premier de tous. La plante n’entretient la symbiose que si elle en a besoin. Servez-lui le phosphore tout prêt et elle réduit la colonisation de ses racines, puis renvoie le champignon. On paye deux fois, l’engrais et la perte du réseau. Le seuil a été mesuré sur légumineuse, on l’a vu avec le nodule : huit à dix milligrammes de phosphore extractible à l’eau par kilo de substrat, au-delà desquels le champignon et le rhizobium se disputent le carbone de la plante. Une non-légumineuse n’a qu’un symbiote à perdre, et elle le perd par le même mécanisme, à un seuil que ces essais n’ont pas mesuré. Ce phosphore extractible à l’eau n’est pas celui des bulletins d’analyse courants, Olsen ou Joret-Hébert, dont les valeurs sont bien plus hautes pour un même sol. Le chiffre ne se transpose donc pas tel quel à votre bulletin.
L’azote minéral en excès produit un effet voisin, et il éteint en plus la fixation dans les nodules.
Le travail du sol. Le réseau extraracinaire est un lacis d’hyphes qui traverse le sol de racine en racine. La charrue le hache. Le champignon reconstruit, mais il repart d’un niveau plus bas, et si on recommence chaque année il ne remonte jamais. C’est, on l’a vu dans la première partie, le premier facteur mesuré.
Le sol nu, dont nous avons parlé.
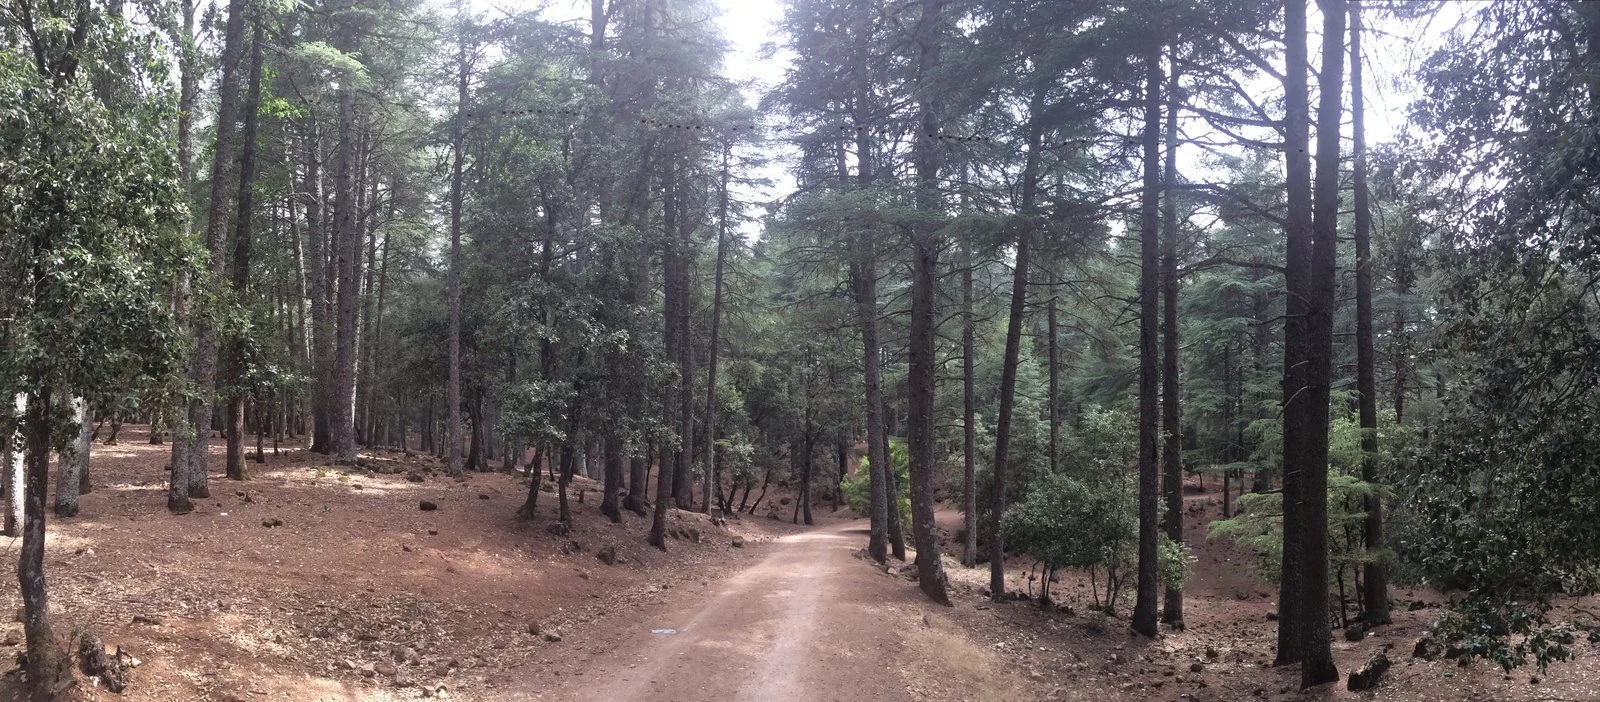
Moyen Atlas. Le peuplement tient encore, le sol ne tient plus. Ici, l’arbre est protégé, le sol ne l’est pas.
Les couverts purs de crucifères avant une culture très dépendante, avec la réserve exposée dans la première partie sur l’ampleur réelle de l’effet. Une nuance encore, car on m’oppose souvent le sarrasin. Le sarrasin n’est pas mycorhizé, ce qui ne l’empêche pas d’être utile pour d’autres raisons, notamment sa capacité à mobiliser le phosphore du sol par ses exsudats. Il n’est pas interdit, il est simplement inutile comme plante relais. Il faut l’accompagner et non le semer seul.
Certains fongicides, enfin, dont les effets sur les mycorhizes sont rarement affichés sur l’étiquette.
Ce que l’on peut honnêtement dire du réseau qui nourrit les voisins
Il faut maintenant parler de l’image qui a fait le tour du monde, celle de la forêt solidaire où les grands arbres nourrissent leurs jeunes par un réseau souterrain. Je ne la reprendrai pas telle quelle.
Ce qui est solidement établi tient en quelques points. Les hyphes d’un même champignon colonisent effectivement les racines de plusieurs plantes voisines, y compris d’espèces différentes. Des molécules marquées passent d’une plante à l’autre par cette voie, on l’a montré dès les années quatre-vingt-dix entre bouleau et douglas. Des signaux passent aussi : chez la féverole attaquée par des pucerons, les plantes voisines reliées par le mycélium, et elles seules, ont déclenché leur défense et émis les composés volatils qui repoussent le puceron et attirent son parasitoïde. Enfin, il existe des plantes entièrement dépourvues de chlorophylle, la monotrope des pinèdes, que la première partie a croisée, et la néottie nid d’oiseau de nos hêtraies, qui vivent branchées sur le réseau d’un arbre sans jamais fabriquer un gramme de sucre. Celles-là sont la preuve vivante que du carbone circule et peut alimenter un organisme complet.
Ce qui n’est pas établi, c’est l’interprétation généreuse qu’on en a tirée. En 2023, Karst, Jones et Hoeksema ont examiné dans Nature Ecology and Evolution la littérature sur ces réseaux communs en forêt. Leur conclusion est nette : l’idée que les réseaux soient omniprésents en forêt et que les transferts améliorent la survie des semis n’est pas suffisamment étayée, les résultats de terrain variant trop ou admettant d’autres explications. Et l’idée que les arbres adultes envoient préférentiellement des ressources et des signaux à leur descendance ne repose sur aucune publication à comité de lecture. Ils ont aussi montré un biais de citation, les résultats positifs étant repris bien plus souvent que les résultats nuls.
Le débat est vivant et il faut le dire aussi. Simard et ses collègues ont publié une réponse en 2025, d’autres équipes ont proposé en 2024 de préciser la définition même de ces réseaux, en distinguant le simple partage d’un champignon de la continuité réelle des hyphes entre deux plantes.
Quant aux quantités, elles commencent à être mesurées. Le travail de 2025 sur les orchidées et les pins chiffre les transferts à 1 à 3,7 pour cent du carbone assimilé et 0,2 à 12,2 pour cent de l’azote acquis, de quoi compter, pas de quoi nourrir un petit sapin tout seul.
Ma position est simple et je la tiens pour toute l’écologie fonctionnelle. Aucun mécanisme n’est établi seul, chacun dépend du contexte, et pourtant l’ensemble fonctionne sur le terrain de façon reproductible. Décrire l’ensemble en restant prudent sur chaque pièce, c’est l’exercice. Je n’ai pas besoin que les arbres s’aiment pour savoir qu’un sol dont le réseau est intact fait pousser mieux, plus longtemps et avec moins d’eau qu’un sol dont le réseau est haché. Cela, je le vois chaque saison.
Le réseau construit aussi le sol
Un dernier fait, souvent oublié dans les débats sur qui nourrit qui. Le carbone qui descend dans le réseau ne fait pas que nourrir le champignon. Une partie sort dans le sol.
En isolant des hyphes de toute racine par une lame d’air et en marquant le carbone, l’équipe de Kakouridis, celle qui avait mesuré le transport d’eau dans la première partie, a mesuré en 2024 que le champignon avait transféré 0,77 milligramme de carbone par gramme de sol. Un tiers s’est retrouvé dans les fractions occluses ou associées aux minéraux, c’est-à-dire dans les formes stables de la matière organique. Autour des hyphes vit l’hyphosphère décrite au chapitre bactérien, une population nourrie par leurs exsudats sucrés.
Une plante branchée ne se contente donc pas de mieux manger. Elle finance, par sa photosynthèse, la fabrication de sol stable et l’entretien d’une population microbienne à distance de ses racines. C’est un argument que je place volontiers devant un service technique qui hésite entre un amendement acheté chaque année et un système qui se paye tout seul.
Sur le terrain
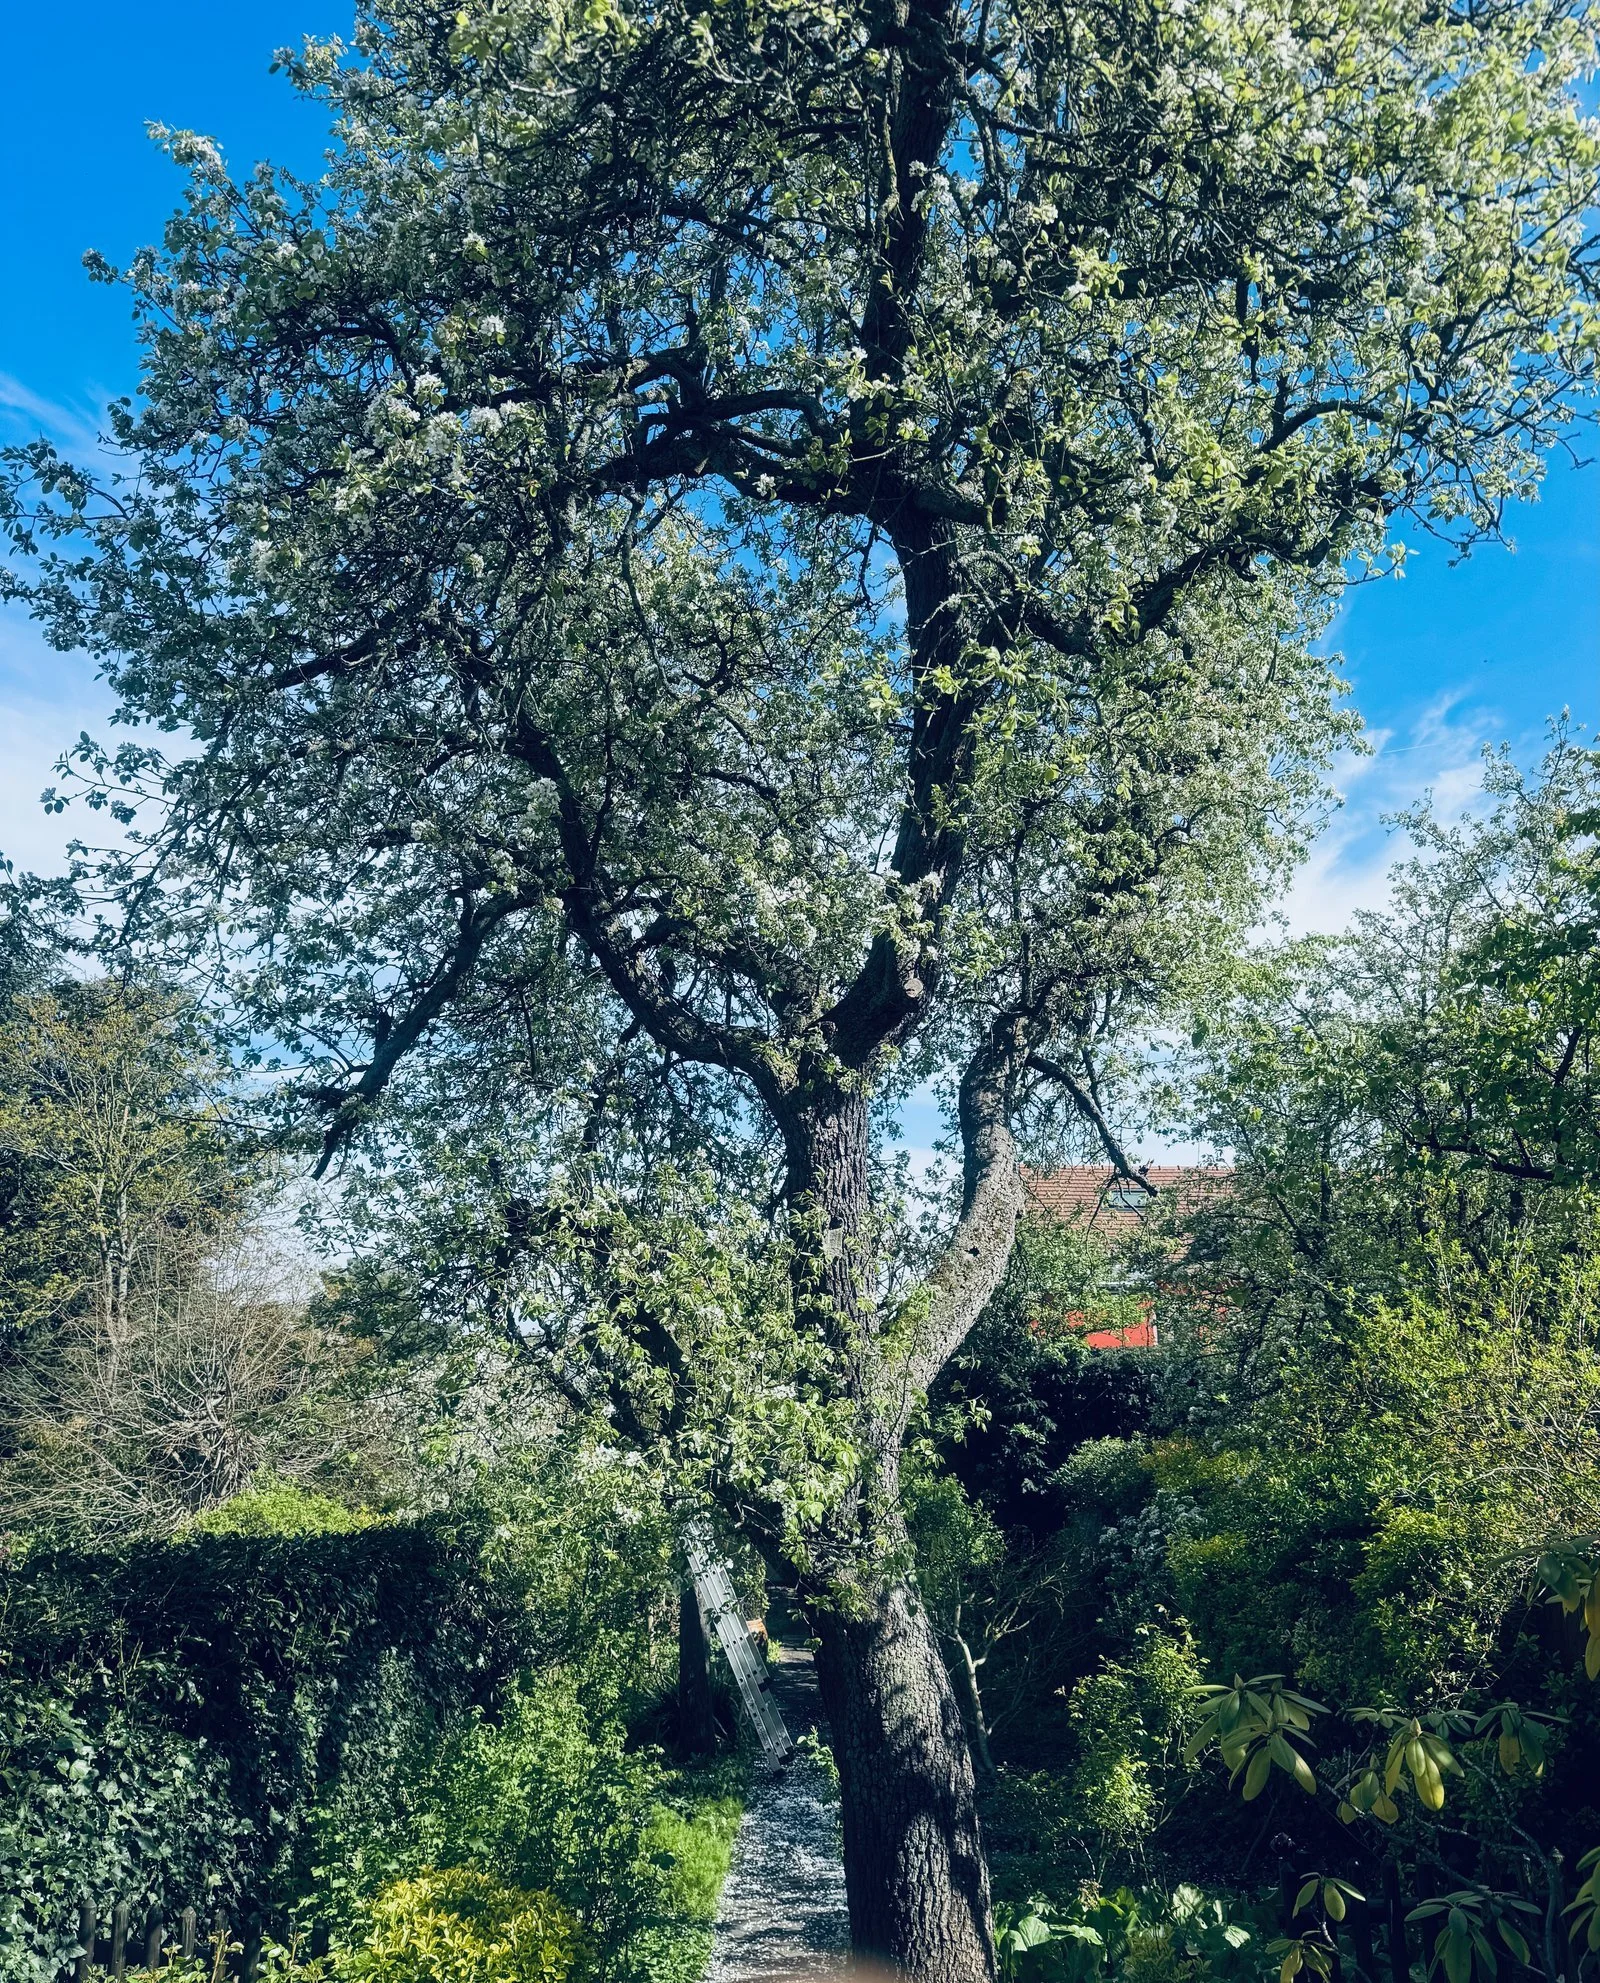
Meudon. Un vieux poirier en fleurs, arbusculaire comme le pommier, la vigne et presque tout le potager. Une poignée de terre prise sous un sujet de cet âge porte la souche qui a déjà fait ses preuves ici.
Comment installer ce réseau, maintenant, quand il n’y est plus ?
D’abord en cessant de le détruire. Les points énumérés plus haut font, à eux seuls, l’essentiel du travail, et ils ne coûtent rien. Ensuite en réintroduisant l’hôte, c’est-à-dire la plante relais permanente. Le champignon revient de lui-même dans la plupart des sols de nos régions, à condition qu’il trouve une racine vivante et qu’on lui laisse deux ou trois saisons.
Et l’inoculum du commerce, me demandera-t-on. Il faut ici être direct, car le sujet coûte de l’argent aux gens. Une méta-analyse parue dans New Phytologist en 2025 a rassemblé 302 essais d’inoculums, dont 250 essais de produits commerciaux, sur sept espèces cultivées. Les produits du commerce donnaient en moyenne moins de 9 pour cent de colonisation par les hyphes, contre 39 pour cent pour de la terre de champ et 41 pour cent pour des inoculums produits en laboratoire de recherche. Quatre-vingt-quatre pour cent des essais de produits commerciaux n’ont produit aucune colonisation ou une colonisation négligeable, et 81 pour cent aucun arbuscule, c’est-à-dire aucun organe d’échange. Environ 6 pour cent ont tué la culture. Le pathogène Olpidium a été trouvé onze fois dans des produits du commerce. Un essai sur huit seulement, douze pour cent et demi, combinait un vrai gain de croissance et une colonisation suffisante.
Le détail le plus instructif est ailleurs. Près de la moitié des produits commerciaux amélioraient la croissance sans coloniser du tout, ce qui signifie que le bénéfice venait de l’engrais contenu dans le sachet et non du champignon. Et le nombre de propagules annoncé sur l’étiquette n’était corrélé ni à la colonisation ni à la réponse de la plante. Ce n’est pas une question de quantité, c’est une question de viabilité à l’arrivée. Deux précisions d’honnêteté : il existe donc de bons produits, ceux de ce huitième d’essais où le champignon était vivant et bénéfique, et l’auteure principale de cette étude déclare elle-même diriger une société d’inoculum, ce qui n’invalide pas des chiffres publiés et relus, mais mérite d’être su.
Un chiffre surtout, que personne ne met en avant : la terre de champ a fonctionné dans la totalité des essais où elle servait de référence. Le meilleur inoculum est rarement celui que l’on achète. Il est souvent à trente mètres, sous une plante saine du même circuit. Une motte prélevée sous une haie ancienne, sous un vieux poireau monté à graine, sous un noisetier de bord de chemin, contient les trois formes de propagules : des spores, des fragments d’hyphes et des racines colonisées. Elle contient en plus la souche locale, celle qui a déjà fait la preuve qu’elle supportait ce sol, ce calcaire, cette sécheresse. On en prend quelques litres dans les vingt premiers centimètres, le jour même de la plantation. On ne tamise pas, puisque les racines colonisées en font partie, et l’on place cette terre au contact de la racine, pas en surface.
Le biochar entre ici dans le dispositif, et pour des raisons précises qui n’ont rien de magique. Sa porosité offre un habitat protégé où hyphes et spores s’installent, et les hyphes accèdent à des micropores où aucune racine n’entrera, y compris pour y prélever du phosphore. Une synthèse mondiale récente, portant sur 85 études et 663 comparaisons, conclut à une augmentation moyenne de la colonisation racinaire d’environ 26 pour cent avec les biochars issus de résidus végétaux. L’effet est plus marqué en sols grossiers et bien pourvus en carbone, et sur les cultures fruitières et à tubercules. Les travaux anciens qui rapportaient l’inverse, notamment avec des biochars de bois, l’attribuaient à une hausse brutale du phosphore disponible, ce qui nous ramène au premier point de la liste des casseurs de réseau. La dose et la préparation font tout. Un biochar brut, non inoculé, apporté seul et en excès, commence par capter ce qui passe. Chargé au préalable et dosé, il fait l’inverse. C’est la raison pour laquelle je le prépare toujours avant de l’enfouir.
Le principe du puits garni de matériau poreux n’est pas nouveau, on le retrouve dans le système de plantation de Stockholm comme dans des pratiques sahéliennes bien plus anciennes. Ce que je conduis avec le forage de biochar autour d’arbres déjà en place, c’est le réglage de cet assemblage site par site : la composition de la charge, l’alimentation en eau à faible débit, la façon de percer sans blesser l’arbre. On commence par un avant-trou de petit diamètre, pour vérifier que l’on passe entre les charpentières et les réseaux, quitte à se décaler, et l’on élargit ensuite. Ce réglage est un travail de mission, pas une recette.
Concevoir un espace vert qui tient
Tout ce qui précède se ramasse en une doctrine de conception, et elle ne ressemble pas à celle qui a cours. Je la donne telle que je l’applique, avec ce que la littérature urbaine confirme, et avec ce qu’elle refuse de confirmer. Ce chapitre s’adresse d’abord à ceux qui écrivent des marchés. Le jardinier y trouvera aussi son compte, et son résumé l’attend juste après.
Disons d’abord que le sujet sort de l’ombre. Une revue parue en 2026 dans Ecological Restoration, intitulée « Designing the Fungal City », constate que les champignons mycorhiziens sont l’un des acteurs fondamentaux absents de la conception écologique et de l’architecture du paysage. C’est exactement le vide dans lequel nous travaillons.
On conçoit avec des circuits, pas avec des listes d’espèces. L’unité de projet n’est plus la plante, c’est l’économie nutritionnelle à laquelle elle appartient. Un chêne et un noisetier forment une unité. Un chêne et un tapis de bruyères en forment deux, qui s’ignorent. Cette seule bascule réorganise toutes les palettes végétales existantes, et elle est vérifiable au moment du choix des essences, pas trois ans plus tard.
Les espèces à double abonnement sont un joker, et il faut savoir qu’on en dispose. Saule, peuplier, aulne, frêne, eucalyptus, acacia et quelques chênes portent les deux circuits à la fois. Sur un site dont on ignore l’état biologique, sur un remblai, sur une friche décapée, ils s’installent avec ce qu’ils trouvent au lieu d’attendre le partenaire qui manque. La souplesse symbiotique ne dispense pas pour autant de la physiologie de l’arbre. Les saules et les peupliers de ripisylve, comme l’aulne glutineux, sont des phréatophytes : ils vivent les pieds sur une nappe accessible. Un remblai sec les met en défaillance hydraulique bien avant que leur double abonnement ne les serve. Leur avantage joue sur les sols à régime extrême, engorgés puis secs, pourvu que l’eau réponde. Sur les remblais secs, les pionniers sont le saule marsault et le tremble, qui est un peuplier, et c’est à eux que cette souplesse profite. Le frêne et les chênes de cette liste sont moins exigeants. Et comme les espèces à double abonnement occupent une aire climatique plus large que celles à circuit unique, elles encaissent mieux un climat qui bouge : elles gardent une option ouverte sur le sol noyé de février comme sur le sol cuit d’août. Ce n’est pas une raison pour en faire une palette entière, c’en est une pour en mettre dans chaque projet difficile.
La résilience est la redondance des voies d’acquisition, pas la redondance des espèces. Planter quinze espèces qui prospectent toutes le phosphore minéral par la même voie ne diversifie rien du point de vue du sol. Superposer trois circuits sur la même emprise, comme le fait spontanément une chênaie, met trois métiers sur trois ressources. Si l’un décroche pendant une canicule, les autres tiennent. C’est de la biodiversité fonctionnelle, et cela se défend devant un service technique qui n’a que faire d’un argument esthétique.
L’air d’hiver se conçoit avant l’eau d’été. Sur terre lourde, la plantation se fait sur une butte légère, après décompaction si des engins sont passés, et jamais en automne, qui livrerait le jeune sujet à six mois sans air. On refuse un drainage seul, qui avance la sécheresse de printemps. La hauteur de la butte se lit dans les deux trous : c’est ce qui manque à la bande. Et la réception d’un sol se fait en février, pas en juillet, avec le trou d’eau creusé comme pour lire la bande. Le trou de mai viendra plus tard, pendant le suivi d’établissement.
Le sol nu est le seul interdit absolu. Le champignon meurt sans racine vivante. Cela ne se règle pas en phase d’entretien, cela s’écrit dans les pièces du marché : couvert vivant permanent sur l’emprise racinaire, bande enherbée maintenue, pas de désherbage à blanc entre deux plantations, reprise du couvert dans les semaines qui suivent un terrassement. La pelouse survivrait à la perte du réseau, l’arbre non : c’est pour lui que le couvert est là. Les cinquante-quatre études de plein champ, citées dans la première partie, valent ici, avec les légumineuses en tête. La méta-analyse porte sur des couverts d’interculture, et l’extension au couvert permanent est un raisonnement de ma part, pas un résultat mesuré. Aucune plantation livrée ne rattrape, dans son année de garantie, ce qu’un sol nu de deux saisons a détruit.
Une nuance, qui n’entame pas la règle. Sur une jeune plantation, la soif de l’herbe pèse souvent plus lourd que l’absence de champignons, et elle se joue dans les vingt centimètres que tout le monde se dispute. On tient donc un mètre carré paillé de broyat de branches au pied du sujet pendant les trois années d’établissement, paillé et non décapé, le temps qu’il installe assez de racines pour ne plus dépendre de cette seule épaisseur. Le couvert permanent commence au-delà. C’est un résultat classique de la conduite des jeunes plantations, et il ne contredit pas l’interdit du sol nu, puisqu’un paillis n’est pas un sol nu.
Le revêtement se choisit sur ce critère aussi. Un travail italien de 2023 a comparé, sous des arbres de ville, un sol nu, un revêtement perméable et un revêtement étanche. La diversité fongique ne s’effondrait pas dans les trois cas, mais les communautés sous revêtement perméable restaient proches de celles du sol ouvert, tandis que celles des sols scellés divergeaient. Autrement dit, le perméable conserve le cortège du sol vivant, l’étanche en fabrique un autre. C’est une ligne à écrire dans un CCTP, le cahier des clauses techniques d’un marché.
La ville abîme moins qu’elle ne remplace, et cela change la stratégie. Une étude menée à Amsterdam sur l’orme, arbre le plus planté de la ville, a comparé une forêt urbaine, un parc et une rue. Contre toute attente, la diversité des champignons arbusculaires était la plus élevée en rue et la plus faible en forêt urbaine, avec des communautés nettement distinctes selon le degré d’imperméabilisation. Ce ne sont pas les partenaires qui manquent, ce sont les partenaires qui changent, au profit d’espèces généralistes tolérantes à la perturbation. Une nuance qui compte tout de même : un cinquième environ des radicelles d’orme prélevées ne portaient aucun champignon. La conception ne doit donc pas viser à réimporter la forêt en ville, mais à donner aux généralistes urbains de quoi travailler. Nos deux platanes du début n’ont probablement pas manqué de partenaires. Ils en avaient d’autres, et le perdant était celui qui n’avait rien pour les faire travailler, ni racine vivante autour, ni air en février.
Ce qui se passe en haut se lit en bas. Une enquête conduite en Virginie sur des forêts urbaines et périurbaines a croisé un indice de qualité forestière, calculé sur la santé des arbres, l’imperméabilisation et les espèces envahissantes, avec l’état biologique du sol. La part des champignons ectotrophes et le taux de colonisation arbusculaire des racines diminuaient à mesure que la qualité de surface se dégradait. Le sol suit le peuplement, et réciproquement. Ce résultat ne contredit pas le précédent, il le complète : la ville allonge la liste des espèces présentes et raccourcit l’intensité du branchement. Un diagnostic de conception sérieux regarde donc les deux.
Le toit végétalisé est le cas d’école, et il est instructif dans les deux sens. Un substrat de toiture livré neuf ne contient pratiquement aucune propagule. Une expérience de deux ans menée à Chicago a inoculé la moitié des bacs avec un sol prélevé sous une prairie restaurée depuis trente-deux ans, en choisissant délibérément les zones sèches, rocheuses et superficielles pour attraper les souches capables de tenir sur un toit. Résultat, une communauté nettement plus riche et distincte dès quatre mois, renforcée à deux ans, alors que la colonisation par voie aérienne n’apportait qu’une poignée d’espèces à petites spores, du type opportuniste. Voilà pour le bon côté. Le mauvais, qu’il faut dire, c’est que cette inoculation n’a produit aucun effet mesurable sur la survie des plantes ni sur les services attendus du toit pendant la durée de l’essai. Le sol a changé, la végétation n’a pas encore répondu.
Le plant est un véhicule d’inoculation, et personne ne le traite comme tel. Dans cette même expérience, ce sont les sujets plantés adultes avec leur motte qui portaient la communauté fongique la plus riche, tout simplement parce qu’ils avaient apporté leur propre sol. Un plant élevé en tourbe stérile et surfertilisée arrive débranché sur le chantier. Un plant élevé en pleine terre arrive avec son cortège. C’est un critère de sélection de fournisseur, et il ne figure dans aucun cahier des charges que j’ai lu. La ligne tient en une phrase : plants élevés en pleine terre, livrés avec leur motte, hors substrat tourbeux stérile et sans fertilisation de finition.
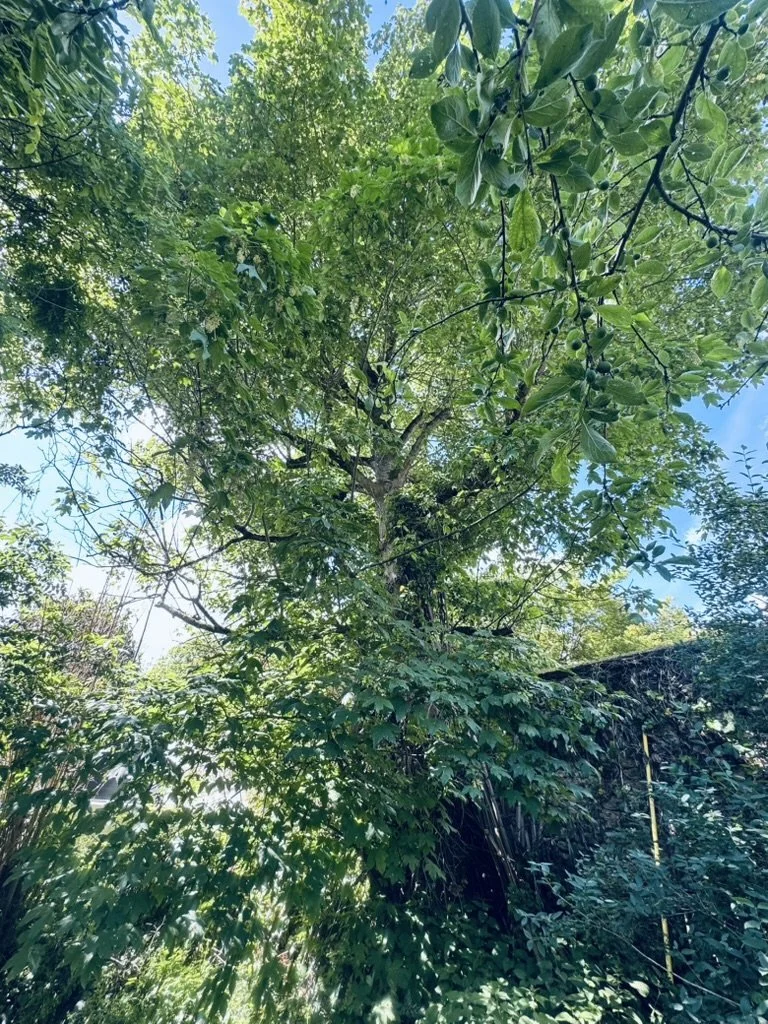
Meudon, fond de jardin. Un érable et un mirabellier mêlés au pied d’un vieux mur, tous deux capables de se brancher sur les mêmes champignons. Un coin que l’on dirait mal tenu, et qui est la réserve du terrain, parce qu’on n’y a jamais bêché.
L’inoculum se conçoit sur place, mais pas n’importe comment. Les produits du commerce échouent dans l’immense majorité des cas, on l’a vu, quand la terre de champ colonise à tous les coups. La conséquence en conception est nette : on identifie sur le site ou à proximité une source de sol vivant, haie ancienne, lisière, friche, on la protège en phase chantier, on la porte au plan comme zone de prélèvement, et on supprime la ligne inoculum du budget.
En ville dense, cette clause ne s’applique pas telle quelle. Sur une requalification de centre-ville il n’y a pas de lisière à trente mètres, et s’il y en avait une son cortège ne serait pas le bon, puisque la rue sélectionne les généralistes tolérants à la perturbation que nous avons vus sur les ormes d’Amsterdam. Le donneur est alors la fosse d’un vieil arbre de rue sain du même quartier, dont je fais l’hypothèse, sans l’avoir mesurée, que les champignons tiennent déjà sous les contraintes du lieu. Trois conditions s’imposent, et elles ne se négocient pas. L’accord du gestionnaire de voirie, car on prélève en domaine public. Une analyse de contamination, car un sol de fosse porte souvent des hydrocarbures, du plomb, du zinc et du chlorure accumulé. Et un avis phytosanitaire, car une terre déplace aussi les pathogènes racinaires, et le chancre coloré du platane est un organisme réglementé dont le sol et les outils sont des vecteurs reconnus. On prélève en périphérie de fosse, sous un arbre du même circuit que le receveur, sans blesser de racine, et l’on place la terre comme dit plus haut, au contact des racines du sujet planté. On protège l’arbre donneur autant que le receveur.
Il y a une limite, réelle, qui vaut aussi d’une fosse à l’autre. Le transfert de sol n’est pas bénéfique par principe. Une expérience de restauration périurbaine conduite sur un ancien golf, avec suivi à cinq ans, a montré que l’apport de sol forestier freinait la croissance des arbres, mais uniquement dans les limons argileux. L’effet dépendait aussi de l’endroit précis où le sol donneur avait été prélevé. Texture et provenance commandent. Un transfert de sol se raisonne, il ne se saupoudre pas.
Le sol donneur choisit la végétation d’arrivée. C’est le résultat le plus utile de toute cette littérature pour un concepteur. Un essai de terrain néerlandais de six ans sur d’anciennes terres arables a montré qu’un apport de sol prélevé sous prairie ou sous lande orientait la végétation qui s’installait d’elle-même vers celle du site donneur, l’effet étant le plus net quand la terre végétale avait été décapée. Le sol n’est donc pas seulement un support à réparer, c’est un levier de composition. On choisit le donneur en fonction de la végétation que l’on veut voir s’installer d’elle-même, entre les sujets plantés, dans dix ans.
L’ancienneté sur place est un critère de conception, au-dessus du sol comme en dessous. Le gel tardif se joue sur trois choses, la date de floraison de l’espèce, le choix de la variété et la taille du sujet. L’amélanchier passe des nuits qui détruisent un abricotier, d’abord parce qu’il fleurit plus tard. À espèce égale, ce sont les vieilles variétés locales qui déçoivent le moins, retenues qu’elles ont été sur des générations sous le climat du lieu, et c’est ce que je constate sans l’avoir mesuré. Un grand sujet à couronne hétérogène ouvre enfin ses fleurs sur plusieurs jours, ce qui étale le risque à l’intérieur du même arbre. Le principe est celui de l’inoculum prélevé sur place, et il vaut pour le plant comme pour la terre. On prend ce qui a déjà tenu ici.
Le sel de déneigement a peut-être sa réponse biologique. Des champignons ectotrophes isolés de sites urbains ont amélioré la tolérance au sel de jeunes pins, en réduisant l’accumulation de sodium dans les parties aériennes. Cela reste un travail sur semis, pas sur alignement de rue, mais cela indique une direction : pour un arbre de rue, la souche pertinente vient probablement d’un sol urbain contraint, pas d’une forêt intacte.
Le réseau est une infrastructure hydraulique. Les hyphes, épaisses de deux à dix micromètres, entrent dans des pores de quelques micromètres, ceux qui restent pleins quand tous les autres se sont vidés. Un espace vert au mycélium intact accède à une réserve que ses racines ne toucheront jamais. En conduite, cela donne une eau légère et permanente plutôt que copieuse et espacée, et un substrat poreux chargé en biologie plutôt qu’inerte. On objectera que l’arrosage espacé force la racine à descendre. Mais ce n’est pas la racine que l’on entretient ici, c’est la bande où travaille le champignon, et lui ne va pas chercher plus loin, il va chercher plus fin.
Les apports se justifient, ils ne se prescrivent pas. Pas de phosphore soluble pendant la phase d’établissement, pas d’engrais de reprise au fond du trou, et tout biostimulant traité comme un intrant à motiver par une carence mesurée. L’eau d’arrosage est analysée avant de dimensionner l’irrigation, sa teneur en nitrate se lisant comme une fumure non déclarée, et sur un sol riche on lui préfère l’eau de pluie.
Enfin, le temps entre dans le marché. Le réseau ne se rétablit pas en un printemps, et les effets de l’inoculation s’observent souvent après plusieurs années, pas la première. Un projet honnête prévoit une phase d’établissement de trois ans avec trois indicateurs simples. Le taux de colonisation racinaire sur prélèvements, aux deuxième et troisième printemps, comparé à celui de l’arbre donneur du site. Le feutrage blanc des champignons de décomposition sous le paillage, signe d’un sol qui respire. Le comportement à la première canicule, feuillage tenu ou grillé, fleurs gardées ou lâchées, et l’année suivante, charpentières sèches ou non. C’est ce qui transforme une plantation livrée en un système suivi.
Une limite à poser soi-même. Rien de tout cela ne repose sur l’idée que les arbres se nourriraient entre eux. Cette doctrine tient sur des mécanismes mesurés : transport d’eau, accès au phosphore, transport de bactéries, structure du sol, carbone stabilisé. Formulée ainsi, elle ne se range pas au rayon des récits sur la forêt solidaire.
Un plan de jardin en quelques lignes
Arrêtez d’abord le labour et le sol nu. C’est là que se joue l’essentiel, davantage que dans le choix des espèces.
Gardez partout une racine vivante, en toute saison, et préférez la légumineuse quand vous avez le choix du couvert. Seule réserve, le mètre carré paillé au pied d’un jeune arbre pendant ses trois premières années.
Regroupez les crucifères et les chénopodes ensemble, dans une même planche, et faites tourner cette planche. Elles ne gênent personne quand elles sont entre elles.
Placez les plus dépendantes, poireau, oignon, carotte, courge, melon, derrière ou avec une légumineuse.
Chez les ligneux, tenez la cohérence du circuit. Chêne, hêtre, châtaignier, noisetier, bouleau, pin d’un côté. Fruitiers, érables, vigne et oliviers de l’autre, avec le frêne qui joue sur les deux tableaux et s’accommode des deux voisinages. Bruyères et myrtilles entre elles, en sol acide.
Avant tout, faites deux trous, un en février, un en mai. Ce qui reste entre les deux est votre marge. Dix centimètres, buttez ou décompactez. Rien, ne plantez pas encore.
Ne plantez pas en automne sur terre lourde, et allez voir votre sol en février.
Faites analyser votre eau d’arrosage pour le nitrate. Sur un sol riche, préférez l’eau de pluie, ou laissez reposer l’eau de ville une nuit, ce qui ne marche que si la commune ne traite pas à la chloramine. Et ne mélangez jamais chlore et engrais.
Ne comptez pas sur un sachet pour réparer ce qu’une conduite répare gratuitement.
Et lâchez le phosphore soluble. C’est la mesure la plus rentable de toutes, puisqu’elle consiste à ne pas dépenser.
Ce jardin, et ce qu’il prouve ou non
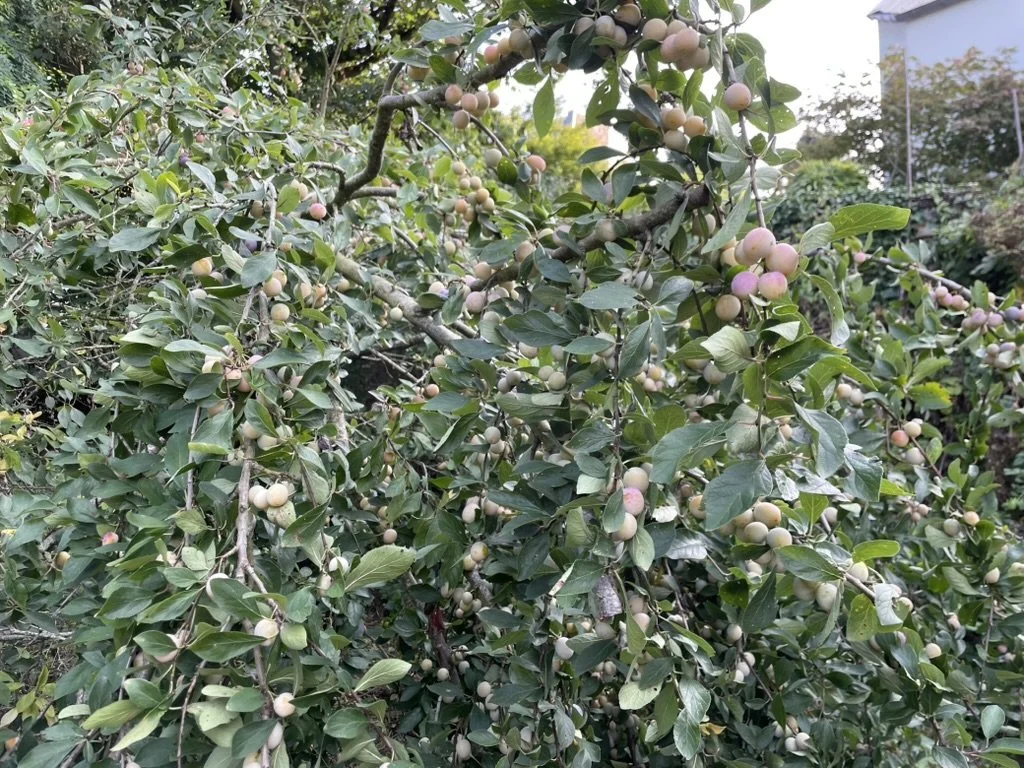
Le même mirabellier, fin d’été. Sol jamais retourné sous la couronne, couvert permanent, aucun engrais et aucun arrosage. Ce que le sol a donné cette année-là est sur les branches, et c’est la seule mesure que ce jardin rende.
Un mot sur les photographies de jardin de ce texte. Le poirier, l’érable et le mirabellier du fond viennent du même terrain, à Meudon. La glycine, photographiée dans la première partie, pousse un peu plus loin dans la même ville, près de l’Observatoire. Ce terrain de Meudon n’a reçu aucun produit depuis au moins cinquante ans, ni engrais, ni traitement, ni amendement acheté, et ce que cela donne est une profusion.
Je n’en tire pas une preuve, et il faut le dire nettement. Un jardin n’est pas un essai. Il n’y a ni témoin, ni répétition, ni mesure, et je ne sais pas ce que ce terrain aurait donné avec des apports. La plupart des travaux cités dans ce texte se comptent en saisons, quelques-uns en années, et les plus longs, la carotte du lac Lama et les herbiers du Minnesota de la première partie, ne sont pas des essais mais des archives, qui ne disent rien d’un jardin. Ce que ce terrain montre est d’un autre ordre, la durée sous une conduite constante, et c’est tout ce que j’en tire.
Il ne montre d’ailleurs pas que tout réussit. Un sol qui fonctionne met à l’abri ceux dont la demande reste dans ce qu’il peut fournir, et pas les autres. L’année où le mirabellier a plié sous les fruits, le kiwi du même jardin a décroché, parce qu’il en demandait plus que la bande de sol n’en avait à donner cet été-là.
Ce que je fais de tout cela
Sur une parcelle, un verger, un espace vert communal ou un jardin de domaine, ce travail prend la forme d’une lecture de terrain, du choix des essences et des couverts selon les circuits en présence, de la conduite du sol saison par saison et d’un suivi sur plusieurs années, puisque le réseau ne se rétablit pas en un printemps. C’est le métier.
Des deux platanes du début, celui qui tient est presque toujours celui dont le sol respirait en février. Ce que l’on tient dans la main en arrachant un poireau, on peut le tenir dans un plan.
Petit lexique
Les mots qui méritent une explication, dans l’ordre alphabétique. Certains figurent aussi dans le lexique de l’autre partie, pour que chacune se lise seule.
Ammonium. Forme minérale de l’azote, présente dans beaucoup d’engrais. Avec le chlore, il forme des chloramines.
Arbusculaire (mycorhize). La plus répandue des associations entre racines et champignons, celle de sept espèces de plantes sur dix. Le champignon entre dans les cellules de la racine et n’est jamais visible à l’œil nu. C’est le circuit de presque tout le potager, des fruitiers, de la vigne, de l’olivier, du platane.
Arbuscule. Petite arborescence que le champignon forme à l’intérieur d’une cellule de la racine. C’est le comptoir où se font les échanges, sucres et lipides de la plante contre eau et minéraux du champignon.
Archées. Micro-organismes sans noyau, longtemps confondus avec les bactéries, qui forment en réalité une branche à part du vivant.
ATP. Petite molécule qui sert de monnaie d’énergie dans toutes les cellules vivantes. Elle contient du phosphore, ce qui explique qu’un nodule en réclame autant.
Azote minéral. L’azote sous forme de nitrate ou d’ammonium, directement absorbable par les racines.
Bactéries auxiliaires de la mycorhization. Bactéries du sol qui favorisent l’installation d’une mycorhize entre un arbre et son champignon.
Bactéries solubilisatrices de phosphore. Bactéries du sol qui libèrent le phosphore bloqué, organique ou minéral, en le rendant soluble.
Biochar. Charbon végétal obtenu en chauffant du bois ou des résidus végétaux presque sans air. Poreux, il sert d’abri aux champignons et aux bactéries du sol, à condition d’avoir été chargé avant d’être enfoui.
Biofilm. Fine couche vivante, faite de micro-organismes collés ensemble dans une gelée qu’ils fabriquent, qui tapisse une surface humide.
Biomasse. Masse totale de matière vivante d’un groupe d’organismes, par exemple de tous les champignons d’un sol.
Biostimulant. Produit vendu pour stimuler la croissance ou la résistance des plantes, à base de micro-organismes, d’extraits d’algues ou de molécules diverses. Son efficacité varie beaucoup d’un produit à l’autre.
Biotrophe obligatoire. Se dit d’un organisme qui ne peut vivre qu’au contact d’un hôte vivant. Le champignon arbusculaire ne se cultive pas sans une racine vivante.
Broyat. Branches et rameaux passés au broyeur, que l’on étale en paillis.
Butte. Léger bombement de terre sur lequel on plante en sol lourd, pour mettre les racines au-dessus de l’eau d’hiver.
CCTP. Cahier des clauses techniques particulières. C’est la pièce d’un marché public qui décrit ce que l’entreprise doit faire et comment.
Champignons de décomposition. Champignons qui vivent de la matière morte, feuilles, bois, paillis. Les spécialistes les disent saprotrophes. Ce sont surtout eux qui forment le feutrage blanc visible sous un paillis. Le réseau arbusculaire, lui, reste invisible.
Chancre coloré du platane. Maladie mortelle du platane, due à un champignon réglementé. Le sol et les outils la propagent.
Charger (un biochar). Laisser le biochar se remplir d’eau, d’éléments nutritifs et de vie avant de l’enfouir. Un biochar brut, enfoui sec, commence par prendre au sol ce qu’on attend de lui qu’il donne.
Charpentières. Les grosses branches maîtresses qui partent du tronc et portent la couronne d’un arbre. Sous terre, on parle aussi de racines charpentières, les grosses racines qui ancrent l’arbre.
Chénopodes. Famille de la betterave, de l’épinard, de la blette et du quinoa, aujourd’hui rangée dans les Amaranthacées. La plupart ne forment pas de mycorhize.
Chevelu racinaire. L’ensemble des racines les plus fines d’une plante, celles qui explorent le sol et absorbent.
Chitine. Molécule riche en azote qui forme la carapace des insectes et la paroi des champignons. Elle représente un gros stock d’azote dans le sol, difficile à ouvrir.
Chloramine. Forme de chlore combiné à l’azote, utilisée par certaines communes pour désinfecter l’eau du réseau. Elle ne s’évapore pas quand on laisse reposer l’eau, contrairement au chlore libre.
Chlore libre. Le chlore ajouté à l’eau de ville pour la désinfecter, sous sa forme active. Il s’évapore en grande partie en une nuit dans un arrosoir laissé à l’air.
Chlore organique. Molécules où le chlore s’est fixé sur la matière organique du sol. Le sol en fabrique naturellement. L’arrosage à l’eau chlorée en ajoute, d’autant plus que le sol est riche en humus, et elles s’y accumulent.
Chlorure. Ion stable qui n’a rien d’un désinfectant, celui du sel de cuisine. Il ne s’évapore pas et s’accumule dans le sol quand on irrigue plus que la pluie ne lessive.
Colonisation (mycorhizienne). Part de la longueur des racines effectivement occupée par le champignon. On la mesure au microscope, après avoir coloré les racines.
Compactage, tassement. Écrasement du sol par des engins ou des passages répétés. Ses vides se ferment, et l’air et l’eau ne circulent plus.
Couvert végétal. Plantes semées ou laissées pour couvrir le sol entre deux cultures ou au pied des arbres. Un couvert d’interculture occupe le sol, souvent l’hiver, entre deux cultures.
Crucifères. Famille des choux, du navet, du radis, de la roquette, de la moutarde et du colza, aujourd’hui appelée Brassicacées. La plupart ne forment pas de mycorhize.
Culture hors sol. Culture sur substrat ou sur support artificiel, sans terre naturelle.
Cytoplasme. L’intérieur d’une cellule, le milieu où baignent ses organes.
Décompaction. Travail qui consiste à ameublir en profondeur un sol tassé par des engins, pour y faire revenir l’air.
Défaillance hydraulique. Rupture de l’alimentation en eau d’un arbre, quand la sève ne monte plus parce que des bulles d’air bloquent ses vaisseaux.
Dihydrogène. Le gaz hydrogène, fait de deux atomes d’hydrogène. Les nodules des légumineuses en rejettent en fixant l’azote.
Double abonnement. Expression de l’auteur pour les plantes capables de porter à la fois la mycorhize arbusculaire et l’ectomycorhize, comme le saule, le peuplier, l’aulne ou le frêne. Les chercheurs parlent de double mycorhization.
Ectomycorhize, mycorhize ectotrophe. Association où le champignon enveloppe l’extrémité des racines d’un manchon et s’insinue entre les cellules sans y entrer. C’est le circuit de la plupart des arbres des forêts tempérées et boréales, chêne, hêtre, pin, et celui des champignons que l’on ramasse, cèpe, girolle, truffe.
Embranchement. Grande division dans la classification du vivant, juste en dessous du règne.
Engorgement. État d’un sol dont tous les vides sont pleins d’eau, si bien que l’air ne circule plus.
Exsudats. Substances, souvent des sucres, que les racines ou les filaments du champignon laissent suinter dans le sol autour d’eux.
Fertilisation par l’hydrogène. Effet supposé de l’hydrogène rejeté par les nodules sur la croissance des plantes voisines, par l’intermédiaire des bactéries du sol. Les résultats sont contradictoires.
Fixation de l’azote. Capacité de certaines bactéries à capter l’azote de l’air et à le transformer en ammoniac, que la plante hôte utilise. Chez les légumineuses et l’aulne, elles le font dans des nodules des racines.
Flagelle. Long filament qu’une bactérie fait tourner pour avancer dans l’eau.
Fosse structurale. Fosse de plantation d’arbre de rue remplie d’un mélange de pierres et de terre, conçue pour porter la chaussée tout en laissant de la place aux racines.
Fractions occluses. Part de la matière organique enfermée dans les agrégats du sol, à l’abri des décomposeurs. Avec la matière collée aux minéraux, plus stable encore, elle forme le carbone durable du sol.
Fumure. L’ensemble des apports d’engrais ou d’amendements faits à une culture. Un plan de fumure en fixe les quantités.
Généralistes (champignons). Champignons peu exigeants sur leur partenaire et tolérants aux perturbations, tassement, chaleur, sel. Ce sont eux qui dominent sous les arbres de rue.
Génome. L’ensemble de l’information génétique d’un être vivant.
Gigaspora. Un genre de champignon arbusculaire, dont certaines espèces hébergent une bactérie à l’intérieur de leurs cellules.
Humus. La matière organique du sol transformée par les êtres vivants, sombre et stable. On distingue plusieurs formes d’humus selon l’activité du sol.
Hydrogénase. Enzyme qui permet à un micro-organisme d’utiliser ou de produire de l’hydrogène.
Hyphe. Filament microscopique qui constitue le corps d’un champignon, de deux à dix millièmes de millimètre d’épaisseur.
Hyphosphère. La mince couche de sol qui entoure les filaments du champignon, où vit une population de bactéries nourrie par ce qu’ils suintent.
Imperméabilisation. Recouvrement du sol par un revêtement qui ne laisse passer ni l’eau ni l’air, bitume, béton, dalles jointoyées.
Inoculation, inoculum. L’inoculation est l’apport délibéré d’organismes vivants, champignons ou bactéries, au sol, à une plante ou à un support comme le biochar. L’inoculum est ce que l’on apporte, produit du commerce ou terre prélevée sous une plante saine.
Isotope. Version d’un même élément chimique qui ne diffère que par son poids. L’azote existe ainsi en version légère et en version lourde, et leur proportion dans une feuille garde la trace du chemin qu’a pris l’azote.
Jachère longue (trouble de la). Trouble d’une culture qui reste naine et carencée après une longue période sans plante hôte, alors que le sol est correctement pourvu. Le réseau de champignons s’est éteint pendant la jachère.
Légumineuses. Famille du pois, du haricot, de la fève, du trèfle, de la luzerne, de la vesce et du robinier. La plupart logent dans leurs nodules des bactéries qui fixent l’azote de l’air.
Limono-argileux. Se dit d’un sol composé surtout de limons, des particules fines, avec une part d’argile. C’est une terre fertile mais qui se tasse facilement.
Méta-analyse. Synthèse statistique de tous les essais publiés sur une question, quand ils se prêtent à la comparaison. Elle donne un ordre de grandeur plus solide qu’un essai isolé.
Milieu tampon. Milieu qui amortit ce qu’on lui verse. Un sol riche en matière organique consomme le chlore presque aussitôt, un bac de substrat ou un mur végétalisé beaucoup moins.
Minéraliser. Décomposer la matière organique jusqu’aux éléments simples, azote, phosphore, que la racine peut absorber.
Monotrope. Petite plante blanche des pinèdes, sans chlorophylle, qui vit entièrement du réseau des champignons de l’arbre voisin.
Mull. Forme d’humus des sols très actifs, où la litière disparaît vite, mélangée à la terre par les vers et les micro-organismes.
Mycélium. L’ensemble des filaments d’un champignon, un lacis qui court dans le sol. Celui des champignons arbusculaires est invisible à l’œil nu.
Mycorhize. Association entre une racine et un champignon du sol. La plante donne des sucres, et des lipides dans le cas arbusculaire. Le champignon rapporte de l’eau et des minéraux qu’il va chercher là où la racine ne passe pas.
Mycorhizosphère. Le sol qui entoure une racine mycorhizée et les filaments de son champignon.
Nématode à galles. Petit ver microscopique qui s’attaque aux racines et y provoque des renflements, les galles.
Néottie nid d’oiseau. Orchidée brune des hêtraies, sans chlorophylle, qui vit entièrement du réseau des champignons des arbres.
Nitrate. Forme d’azote soluble que les plantes absorbent directement. C’est l’une des formes des engrais azotés, et celle que l’on retrouve dans l’eau des nappes.
Nitrogénase. L’enzyme des bactéries fixatrices qui casse la molécule d’azote de l’air pour en faire de l’ammoniac. C’est l’une des réactions les plus coûteuses en énergie du vivant.
Nodule. Excroissance des racines où logent des bactéries fixatrices d’azote. Petite boule chez les légumineuses, amas en forme de corail chez l’aulne. La nodulation est la formation de ces nodules.
Olpidium. Champignon microscopique parasite des racines, trouvé à plusieurs reprises dans des inoculums du commerce.
Olsen, Joret-Hébert. Méthodes d’analyse du phosphore utilisées dans les bulletins de laboratoire courants en France. Elles donnent des valeurs bien plus élevées que le phosphore extractible à l’eau.
Orchidées (mycorhize des). Association où le champignon nourrit la graine d’orchidée, dépourvue de réserves, pendant sa germination. Sans lui, elle ne germe pas.
Paillis. Couche de matière organique, broyat, feuilles, paille, étalée à la surface du sol pour le couvrir et le protéger.
Paires de bases. Unité de longueur de l’ADN, qui en compte les maillons.
Parasitoïde. Insecte, souvent une petite guêpe, qui pond dans un autre insecte, un puceron par exemple, et dont la larve le tue en se développant.
Phase d’établissement. Les premières années qui suivent une plantation, pendant lesquelles le sujet installe ses racines et son réseau. On la compte généralement sur trois ans.
Phosphatase. Enzyme qui détache le phosphore des molécules organiques pour le rendre absorbable.
Phosphore extractible à l’eau. Le phosphore qu’un simple lavage à l’eau retire d’un échantillon de sol, c’est-à-dire la part immédiatement disponible. Cette mesure de laboratoire n’est pas celle des bulletins d’analyse courants.
Phosphore soluble. Le phosphore des engrais qui se dissout tout de suite dans l’eau du sol. Servi en abondance, il dispense la plante de nourrir son champignon, qu’elle renvoie.
Photosynthèse. Fabrication de sucre par la plante à partir de la lumière, de l’eau et du gaz carbonique de l’air.
Phréatophyte. Plante dont les racines vont chercher l’eau dans une nappe ou juste au-dessus. Le saule blanc, le peuplier noir et l’aulne glutineux des bords de rivière en sont.
Phytine. Forme de phosphore stockée dans les graines et les débris végétaux, que la plante ne peut pas absorber telle quelle.
Plante hôte, non-hôte. Une plante hôte est capable de loger un champignon mycorhizien. Une non-hôte, comme le chou, ne le peut pas.
Plante relais. Plante hôte laissée en place entre deux cultures, trèfle, luzerne, graminée, pour que le réseau des champignons ne s’éteigne pas faute de racine vivante.
Pleine terre. Culture en sol naturel, par opposition à la culture en pot ou en conteneur.
Propagules. Tout ce qui permet au champignon de repartir, spores, fragments de filaments et morceaux de racines déjà colonisées.
Protiste. Être vivant, le plus souvent fait d’une seule cellule à noyau, ni animal, ni plante, ni champignon, comme les amibes.
Radicelles. Petites racines fines issues des racines principales.
Réseau extraracinaire. La partie du champignon qui sort de la racine et court dans le sol, parfois d’une racine à l’autre.
Réseau mycorhizien commun. Réseau de champignons qui relie les racines de plusieurs plantes voisines, parfois d’espèces différentes.
Résistance induite. État d’alerte des défenses d’une plante, déclenché au niveau des racines par un champignon mycorhizien ou par certaines bactéries. Ses défenses sont amorcées. Elles se déclenchent plus vite, et souvent plus fort, quand l’attaque arrive.
Rhizobium. Bactérie du sol qui s’installe dans les nodules des légumineuses et y fixe l’azote de l’air.
Rhizosphère. La mince couche de sol au contact des racines, la plus vivante de tout le sol.
Ripisylve. La végétation qui borde un cours d’eau, saules, peupliers, aulnes.
Spore. Cellule de reproduction d’un champignon, qui peut attendre dans le sol avant de germer au contact d’une racine.
Stœchiométrie. Le compte exact de ce qui entre et de ce qui sort dans une réaction chimique.
Substrat tourbeux. Terreau à base de tourbe utilisé en pépinière, souvent fertilisé. Il ne contient pratiquement pas de champignons mycorhiziens, et le plant qui y a poussé arrive sans partenaire.
Symbiose, symbiote. Association durable entre deux êtres vivants différents, où chacun trouve son compte. Les symbiotes sont les partenaires de cette association.
Système de sécrétion de type trois. Appareil moléculaire en forme de seringue par lequel une bactérie injecte des protéines dans une cellule voisine.
Système de Stockholm. Méthode de plantation des arbres de rue où les fosses sont remplies de pierres et d’un matériau poreux, souvent du biochar, sous la chaussée.
Terre lourde. Sol riche en argile ou en limon fin, qui garde l’eau et se tasse facilement.
Texture (du sol). Proportion de sable, de limon et d’argile d’un sol. Elle commande sa façon de garder l’eau et l’air.
Thiamine. La vitamine B1.
Vertisol. Sol très argileux qui gonfle quand il est mouillé et se fend en larges crevasses quand il sèche.
Pour aller vérifier
Harden V. et Moreno-Mateos D., 2026, Ecological Restoration 44 : 23, Designing the Fungal City, revue des réseaux mycorhiziens dans le bâti.
Verbeek C., Gomes S. et Merckx V., 2026, Plants People Planet, ormes d’Amsterdam le long d’un gradient d’urbanisation.
Grassi A. et coll., 2023, Urban Forestry and Urban Greening, effets des revêtements perméables et étanches sur les symbiotes d’arbres urbains.
Gaimaro L. et coll., 2025, npj Urban Sustainability, qualité des forêts urbaines et colonisation mycorhizienne.
Metzler P., Ksiazek-Mikenas K. et Chaudhary V., 2024, New Phytologist 242 : 1814-1824, inoculation active et dispersion passive sur toitures végétalisées.
Bashian-Victoroff C. et coll., 2026, Restoration Ecology 34, inoculation par sol forestier et par produit commercial sur une restauration périurbaine.
Wubs E. et coll., 2016, Nature Plants 2 : 16107, le sol donneur oriente la végétation qui s’installe.
Zwiazek J. et coll., 2019, Mycorrhiza, champignons ectotrophes urbains et tolérance au sel.
Zhang L., Feng G. et Declerck S., 2018, The ISME Journal 12 : 2339-2351, le fructose exsudé par le champignon déclenche la minéralisation de la phytine par une bactérie.
Jiang F. et coll., 2021, New Phytologist 230 : 304-315, bactéries transportées le long des hyphes jusqu’aux poches de phosphore organique.
Emmett B. et coll., 2021, The ISME Journal 15, communautés bactériennes conservées sur les hyphes extraracinaires.
Rozmoš M. et coll., 2022, The ISME Journal 16, azote organique rendu disponible par une bactérie précise et un protiste.
Ghignone S. et coll., 2012, The ISME Journal 6, et Salvioli A. et coll., 2016, The ISME Journal 10, la bactérie endosymbiotique des Gigaspora et son effet sur la vigueur du champignon.
Frey-Klett P., Garbaye J. et Tarkka M., 2007, New Phytologist 176 : 22-36, les bactéries auxiliaires de la mycorhization.
Bonfante P. et Anca I., 2009, Annual Review of Microbiology 63, plantes, champignons mycorhiziens et bactéries, un réseau d’interactions.
Teste F., Jones M. et Dickie I., 2019, New Phytologist 225 : 1835-1851, les plantes à double mycorhization, recensement, écologie et bascule entre circuits.
Rog I., Lerner D., Bender S. et van der Heijden M., 2025, Ecology Letters 28 : e70132, aire environnementale élargie des ligneux à double mycorhization.
Von Hippel B. et coll., 2025, Science Advances 11 : eadj5527, paléométagénomique du lac Lama, altération, cycles et podzolisation sur vingt-trois mille ans.
Michaud T. et coll., 2024, New Phytologist 242 : 1717-1724, herbiers du Minnesota 1871-2016, déclin du statut azoté et effacement de la signature ectotrophe.
Yu Y. et coll., 2022, Soil Ecology Letters 5 : 66-78, métagénomique de la communauté microbienne du sol sous irrigation chlorée continue.
Lonigro A., Montemurro N. et Laera G., 2017, Science of the Total Environment 584-585 : 595-602, composés organo-halogénés dans le sol et la culture sous eau chlorée.
Svensson T. et coll., 2022, Science of the Total Environment 806 : 150478, chloration naturelle de la matière organique selon le type d’humus et l’usage des sols.
Ordóñez-Barona C. et coll., 2018, Environmental Pollution 234 : 562-571, sel de déneigement et performance des arbres urbains en fosses structurales.
Evelin H., Devi T., Gupta S. et Kapoor R., 2019, Frontiers in Plant Science 10 : 470, atténuation du stress salin par la symbiose mycorhizienne arbusculaire.
Averill C., Dietze M. et Bhatnagar J., 2018, Global Change Biology 24 : 4544-4553, la pollution azotée déplace les associations mycorhiziennes des forêts et les stocks de carbone du sol.
Cameron D., Neal A., van Wees S. et Ton J., 2013, Trends in Plant Science 18 : 539-545, la résistance induite par la mycorhize, plus que la somme de ses parties.
Bowles T. et coll., 2017, Journal of Applied Ecology 54 : 1785-1793, méta-analyse travail du sol et couverts, 54 essais.
Thompson J., 1987, Australian Journal of Agricultural Research 38 : 847-867, trouble de la jachère longue.
Walder F. et coll., 2012, Plant Physiology 159 : 789-797, termes d’échange inégaux dans un réseau commun.
Kiers E. T. et coll., 2011, Science 333 : 880-882, récompenses réciproques.
Whiteside M. et coll., 2019, Current Biology 29 : 2043-2050, phosphore déplacé des zones riches vers les zones pauvres.
Babikova Z. et coll., 2013, Ecology Letters 16 : 835-843, signal d’alerte entre féveroles.
Kakouridis A. et coll., 2022, New Phytologist 236 : 210-221, preuve directe du transport d’eau par les champignons mycorhiziens.
Püschel D. et coll., 2017, Frontiers in Plant Science 8 : 390, la mycorhize stimule la fixation d’azote chez deux Medicago par l’acquisition du phosphore, et le seuil de bascule en phosphore.
Tisserant E. et coll., 2013, PNAS 110 : 20117-20122, génome de Rhizophagus irregularis et biotrophie obligatoire.
Dong Z. et coll., 2003, Plant, Cell and Environment 26 : 1875-1879, fertilisation des sols par l’hydrogène, et coût de cinq à six pour cent de la photosynthèse nette.
Dip D. et Constant P., 2025, PeerJ 13 : e20019, effet rémanent de l’hydrogène sur la vesce, résultat négatif.
Simard S. et coll., 1997, Nature 388 : 579-582, transfert net de carbone entre bouleau et douglas au champ.
Rillig M. et coll., 2024, Functional Ecology 39 : 1411-1417, clarification de la définition des réseaux mycorhiziens communs.
Murray J., Liu C., Chen Y. et Miller A., 2017, Journal of Experimental Botany 68 : 1919-1926, nitrate et nodulation, seuils d’inhibition.
Schubert K. et Evans H., 1976, PNAS 73 : 1207-1211, hydrogène évolué par les nodules et efficacité relative de la nitrogénase chez de nombreuses légumineuses.
Greening C. et coll., 2016, The ISME Journal 10 : 761-777, distribution des hydrogénases dans cinquante et un embranchements bactériens et archéens.
Reji L. et coll., 2025, Nature Communications 17 : 515, les sols comme principal puits d’hydrogène atmosphérique.
Cusano A. et coll., 2011, Environmental Microbiology Reports 3 : 203-210, le système de sécrétion de type III d’une bactérie auxiliaire de la mycorhization.
Kakouridis A. et coll., 2024, New Phytologist, carbone transféré au sol et au microbiote des hyphes.
He J. et coll., 2024, The ISME Journal 18, dispersion des rhizobiums le long des hyphes.
Karst J., Jones M. et Hoeksema J., 2023, Nature Ecology and Evolution 7 : 501-511, biais de citation sur les réseaux forestiers.
Simard S., Ryan T. et Perry D., 2025, Frontiers in Forests and Global Change, réponse.
Chen J. et coll., 2025, Frontiers in Plant Science 16, transferts bidirectionnels orchidées et pins.
Koziol L., McKenna T. et Bever J., 2025, New Phytologist 246 : 821-827, méta-analyse des inoculants commerciaux.
Salomon M. et coll., 2022, iScience, qualité des inoculants mycorhiziens du commerce.
Han H., Wang H., Yang Z., Cheng M. et Yang Q., 2026, Agronomy 16 : 263, réponse de la colonisation arbusculaire au biochar, au compost et au fumier, méta-analyse de 85 études et 663 comparaisons.
Yves Nicolas, expert-conseil en écologie fonctionnelle, yvesnicolas.com