Des plantes, des champignons et des bactéries, du potager à l’arbre de rue. Trois réseaux, un sol, et la bande qui décide de tout.
Ce qui se joue sous un arbre de rue, et qui se vérifie sur un poireau
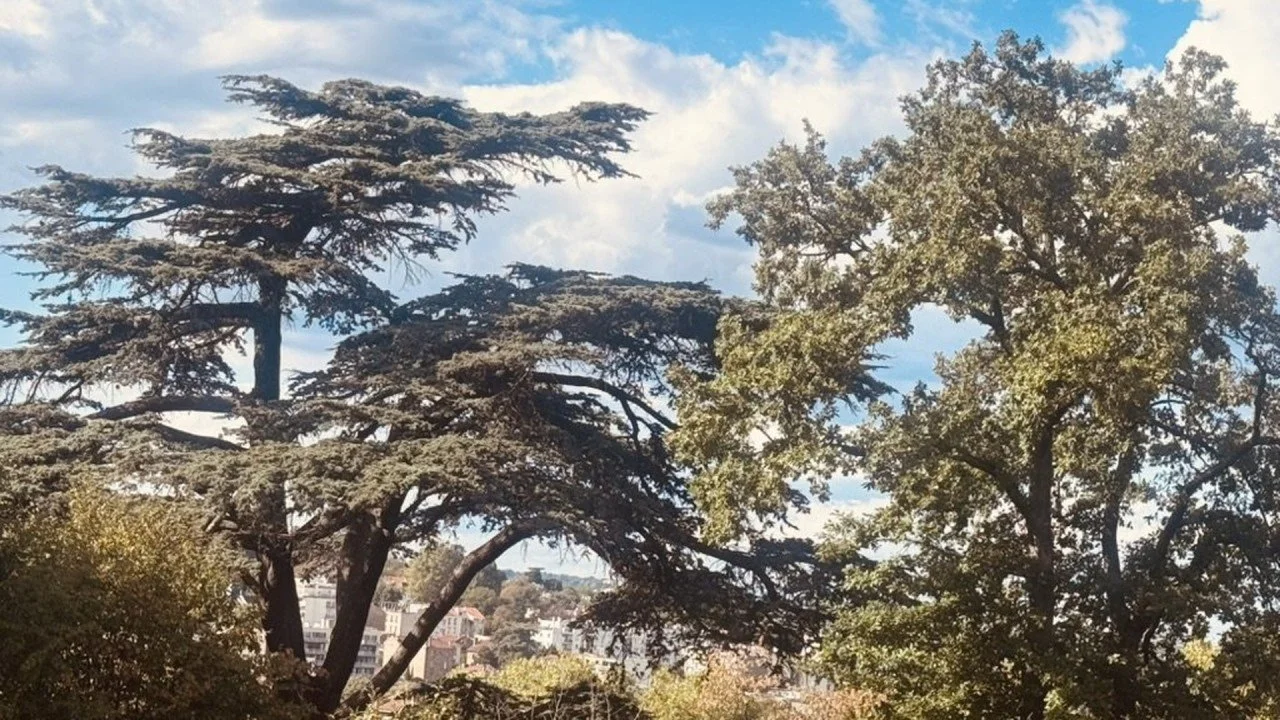
Deux platanes plantés le même jour, dans la même rue, au même diamètre de tronc. Cinq ans plus tard, l’un porte une couronne pleine, l’autre a la moitié de ses charpentières sèches et le service technique parle déjà de le remplacer. Même fosse, même arrosage, même entreprise, même fournisseur. On accuse d’ordinaire le compactage, le sel, les chiens, le volume de terre. On a raison de les citer, et on s’arrête trop tôt. Ils ne tuent pas seulement l’arbre, ils tuent d’abord ce qui travaille sous lui, et cette mort-là ne laisse aucune trace en surface. La vraie différence est souterraine, et elle ne se voit pas sur un arbre.
Elle se voit sur un poireau.
Arrachez-en un au mois d’octobre et regardez ses racines avant de les secouer. Vous verrez quelques cordons blancs, épais comme de la ficelle, raides, presque nus. Pas de chevelu, pas de duvet, rien de cette barbe fine qui fait la fierté des autres plantes. Un poireau explore le sol avec l’équipement d’un débutant.
Arrachez maintenant la carotte qui poussait dans le rang d’à côté. Même surprise. Un pivot lisse, quelques radicelles, et si peu de poils absorbants qu’on se demande comment cette plante trouve de quoi manger. Voilà deux légumes que l’on associe depuis toujours, officiellement pour que l’un éloigne la mouche de l’autre. La raison de fond est ailleurs et personne ne la dit : ils sont abonnés au même réseau, ils traitent avec le même champignon, et aucun des deux ne sait s’en passer. La carotte est même si constante dans cette association qu’elle sert de plante hôte de référence pour cultiver les champignons mycorhiziens au laboratoire.
Arrachez enfin le chou qui poussait à trois pas. Vous tenez le contraire exact. Un buisson de racines fines, ramifiées jusqu’à la dernière division, couvertes de poils absorbants si nombreux que la terre reste collée dessus et ne veut plus partir. Le chou a construit lui-même son réseau d’exploration, centimètre par centimètre, et cela lui a coûté une part considérable de son sucre.
Trois plantes, un même sol, une même pluie, et deux stratégies opposées. Le poireau et la carotte n’ont pas de chevelu parce qu’ils n’en ont pas besoin. Ils sous-traitent. Ils louent le chevelu d’un champignon, cent fois plus fin que la plus fine de leurs radicelles, capable d’entrer dans des pores où aucune racine ne passera jamais. Le chou, lui, ne sous-traite rien, parce que personne ne veut travailler avec lui.
Revenons à la rue. Le platane travaille exactement comme le poireau et la carotte, avec la même famille de champignons, et, selon toute vraisemblance, il en dépend autant. Ce que vous tenez dans la main explique l’arbre que vous ne pouvez pas déterrer. Le poireau, la carotte et le platane ont le même fournisseur. Seule l’échelle change. Une planche de poireaux ratée se resème au printemps. Un arbre raté se remplace, et se remplace encore, et l’ombre n’arrive jamais.
Tout l’art d’associer les plantes commence là. Il y a celles qui sont branchées sur le réseau et celles qui ne le seront jamais. Le jardinier qui l’ignore fait cohabiter des plantes. Le concepteur qui l’ignore juxtapose des systèmes. Celui qui le sait fait travailler des plantes ensemble. Ce n’est pas la même récolte, ni la même couronne à quinze ans.
Ce qui suit vaut donc pour une planche de légumes comme pour un alignement de ville, pour un verger comme pour un toit végétalisé. Les mécanismes sont les mêmes, seuls les moyens changent. Et cela ne suffit pas encore, car le réseau n’est pas une coopérative bienveillante, c’est un marché où certains payent pour les autres.
Comment se servir de cet article
Ce texte n’est pas un traité de mycologie. C’est un manuel de décision, et il se lit différemment selon ce que vous plantez. Voici comment je vous conseille d’y entrer. Si vous jardinez simplement, lisez dans l’ordre, ce texte est écrit pour vous, et « Un plan de jardin en quelques lignes » vous attend à la fin de la seconde partie. L’article paraît en effet en deux fois. Celle-ci s’arrête à « La bande de sol qui décide de tout ». La seconde reprend à « L’eau que l’on verse » et se termine sur le plan de jardin et sur ce que mon jardin prouve ou non. Dans les conseils qui suivent, les chapitres de la seconde partie sont signalés.
Si vous gérez des espaces verts de ville. Votre problème n’est pas le choix des essences, il est le sol et le chantier. Lisez « Le réseau ne prend pas tout le monde », puis « Trois réseaux qui ne se parlent pas », qui dit en cinq minutes qui se branche sur quoi et sans lequel la suite ne tient pas. Passez par « L’hiver noie plus souvent qu’il ne gèle » et « La bande de sol qui décide de tout ». C’est le compactage de chantier suivi d’un hiver saturé, bien plus que la canicule, qui sépare les deux platanes, et cela se voit à la bêche : un trou en février, un autre en mai. Allez ensuite à « Concevoir un espace vert qui tient » (seconde partie), qui traduit tout le reste en clauses écrites. Couvert vivant permanent sur l’emprise racinaire, hormis le mètre carré paillé des trois premières années au pied d’un jeune sujet ; revêtements perméables ; interdiction du phosphore soluble, celui des engrais qui se dissout tout de suite, pendant toute la période d’établissement ; mode de production des plants exigé au fournisseur ; phase d’établissement de trois ans inscrite au marché. Un chiffre décidera de vos arbitrages. Sur cinquante-quatre études de plein champ, réduire le travail du sol et implanter un couvert d’hiver augmentent chacun d’environ trente pour cent la colonisation mycorhizienne de la culture suivante. La colonisation, c’est la part de racine effectivement occupée par le champignon. Aucune plantation livrée ne rattrape, dans son année de garantie, ce qu’un sol nu de deux saisons a détruit. Et sachez que la ville ne détruit pas vos partenaires, elle les remplace par des espèces tolérantes à la perturbation : l’objectif n’est pas de réimporter la forêt en ville, c’est de donner à ces généralistes urbains de quoi travailler. La fin de « L’eau que l’on verse » (seconde partie) vous parle du sel et des murs végétalisés, et « L’azote que personne n’a décidé » (seconde partie) de la seule ligne d’analyse à ajouter au marché.
Si vous avez un domaine, un verger, un grand jardin. Vous avez ce que la ville n’a pas, de la continuité et du temps. Votre levier principal est la plante relais et la haie. Lisez « La plante relais » (seconde partie), « Trois réseaux qui ne se parlent pas » et « Un plan de jardin en quelques lignes » à la fin de la seconde partie. Votre première décision n’est pas d’acheter quelque chose, elle est d’arrêter deux choses, le sol nu et le phosphore soluble. Votre deuxième est de repérer, sur votre propre propriété, la haie ancienne ou la lisière qui vous servira de banque, et de la protéger. Avant tout achat, faites les deux trous de « La bande de sol qui décide de tout », et lisez « L’eau que l’on verse » (seconde partie), car sur un sol riche l’eau de ville chlorée coûte plus cher que vous ne croyez. « L’azote que personne n’a décidé » (seconde partie) vous dira ensuite pourquoi un forage chargé en nitrate freine des couverts que vous croyiez gratuits.
Si vous cultivez, en maraîchage ou en grandes cultures. Entrez par « Le réseau ne prend pas tout le monde », qui vous dira pourquoi vos crucifères et vos betteraves ne se comportent pas comme le reste, puis par « Ce qui casse le réseau » (seconde partie). Et ne sautez pas « La plante relais » (seconde partie), dont le passage sur le trouble de la jachère longue décrit une situation que vous avez peut-être déjà vue sans la nommer, une culture naine en sol correctement pourvu. Et lisez attentivement « Le réseau est un marché, pas une coopérative » (seconde partie), parce qu’il explique pourquoi les tableaux d’associations recopiés d’un livre à l’autre fonctionnent chez l’un et pas chez l’autre. Faites analyser votre eau d’irrigation, « L’azote que personne n’a décidé » (seconde partie) chiffre la fumure non déclarée qu’elle apporte. Et « La bande de sol qui décide de tout » explique pourquoi la fenêtre de recolonisation du printemps se referme plus tôt qu’avant.
Si vous reboisez ou restaurez. « Trois réseaux, un seul sol », « Le nord mine, le sud prospecte » et « Concevoir un espace vert qui tient » (seconde partie) vous concernent en premier. Le premier des trois pose la règle qui gouverne tout le reste : on introduit un nouveau venu au contact d’un hôte résident, jamais seul en plein champ nu. Et si le nouveau venu ne porte qu’un circuit, l’hôte doit porter le même. Lisez aussi « Le sol se souvient » : un sol est habité ou mal habité, pas jeune ou vieux, mais une podzolisation ne se défait pas. Et si la bande décrite plus loin n’existe pas, aucune essence ne sauvera la plantation.
Six choses à savoir avant de commencer, quelle que soit votre entrée.
La première. Le sol décide avant la liste d’espèces. Une palette végétale magnifique posée sur un sol dont le réseau est haché donnera des plantes dépendantes de l’arrosage et de l’engrais. L’inverse est vrai aussi, et c’est la bonne nouvelle : un sol dont le réseau est intact rattrape beaucoup d’erreurs de palette.
La deuxième. Rien ne fonctionne sans racine vivante. Le champignon ne vit que sur une plante vivante, il ne se conserve pas dans la terre comme une graine. Toute période de sol nu est une perte de capital, et cette perte ne se rachète pas, elle se reconstruit en saisons.
La troisième. N’achetez pas ce que vous pouvez prélever à trente mètres. Sur deux cent cinquante essais de produits mycorhiziens du commerce, quatre-vingt-quatre pour cent de ces essais n’ont produit aucune colonisation ou presque, tandis que la terre de champ a colonisé dans la totalité des essais où elle servait de référence. Avec une réserve que je maintiens : le transfert de sol se raisonne selon la texture et la provenance, il ne se saupoudre pas.
La quatrième. Comptez trois ans, pas un printemps. Le réseau se reconstruit en deux à trois saisons, et les effets d’une inoculation, c’est-à-dire de l’apport délibéré d’organismes vivants, ne se lisent pas la première année. Un projet qui promet un résultat immédiat ment, y compris à lui-même.
La cinquième, et c’est la plus dérangeante. Il n’existe pas de tableau d’associations valable partout. Ce que vous lirez dans la seconde partie sur le lin et le sorgho montre que le partage entre deux plantes reliées dépend de l’espèce de champignon présente dans votre sol, et qu’il peut s’inverser d’un partenaire à l’autre. Vous ne cherchez donc pas la bonne recette, vous cherchez les bonnes conditions.
La sixième. Le sol se lit en février, pas en juillet. Deux trous, l’un en février, l’autre en mai, avant toute liste d’espèces. Ce qui reste entre l’eau qui stationne et la terre déjà sèche est la seule bande où le réseau peut travailler toute l’année.
Et une mise en garde sur ce que cet article n’est pas. Ce n’est pas une méthode de fertilisation. Rien de ce qui suit ne s’achète en sac et ne s’épand. L’inoculant à rhizobium des légumineuses, qui se met sur la graine et non dans le sol, n’est pas concerné. Dans la seconde partie apparaîtra une seule exception qui se met en terre, et elle est partielle : le biochar, ce charbon végétal poreux. C’est un habitat plutôt qu’un engrais, encore faut-il le charger avant de l’enfouir. On le laisse d’abord se remplir d’eau, d’éléments et de vie, faute de quoi il les prend au sol. Ce chargement est un réglage de chantier que je ne réduirai pas à une recette, et une collectivité peut produire le biochar de ses propres déchets verts au lieu de l’acheter. Ce sont des règles de conduite, des choses à faire et surtout à cesser de faire. Leur coût principal est un changement d’habitude, et leur bénéfice se mesure en années. Si vous cherchez un produit, vous perdrez votre temps. Si vous cherchez à dépenser moins en tenant mieux la sécheresse, vous êtes au bon endroit.
Le réseau ne prend pas tout le monde
La mycorhize est cette association entre une racine et un champignon du sol qui date de la sortie des eaux. Les premières plantes terrestres n’avaient pas de vraies racines. Elles avaient déjà des champignons. Dans les silex de Rhynie, en Écosse, on a retrouvé des arbuscules fossilisés, intacts, identiques à ceux que l’on colore aujourd’hui dans une racine de trèfle. Ce sont les organes d’échange entre la plante et le champignon, et nous les retrouverons. La racine est venue après le champignon, et non l’inverse.
Le décompte a été fait sérieusement. En rassemblant cent trente-cinq ans de publications et les phylogénies récentes, Brundrett et Tedersoo ont établi en 2018 que 72 pour cent des espèces de plantes vasculaires forment des mycorhizes arbusculaires, 2 pour cent des ectomycorhizes, 1,5 pour cent des mycorhizes éricoïdes et 10 pour cent des mycorhizes d’orchidées. Huit pour cent seulement sont totalement non mycorhizées, et 7 pour cent le sont de façon inconstante. Les chiffres sont arrondis, ils ne tombent pas juste à cent. Ce ne sont encore que quatre noms et un ordre de grandeur. Ce que chacun recouvre viendra un peu plus loin, avec les trois réseaux qui ne se parlent pas.
Ces 8 pour cent ne forment pas une poussière d’exceptions botaniques. C’est une liste que tout jardinier connaît par cœur, sans savoir qu’elle constitue une famille de comportement.
Les crucifères d’abord, c’est-à-dire les choux sous toutes leurs formes, le navet, le radis, la roquette, la moutarde, le colza, la cameline. Ensuite les chénopodes au sens large, betterave, épinard, blette, quinoa. Puis les polygonacées, sarrasin, oseille, rhubarbe. Les caryophyllacées, dont l’œillet et la stellaire. Les joncs et une partie des laiches. Et, dans les sols les plus pauvres du monde, les protéacées australiennes et notre lupin, qui ont inventé autre chose.
Ces plantes ne sont pas infirmes. Elles ont choisi une autre voie. Le chou fabrique un chevelu massif et paye lui-même la facture. Le lupin fait mieux encore, il produit des racines protéoïdes, des grappes de radicelles serrées comme une brosse, qui déversent localement des acides organiques et arrachent au sol le phosphore que les autres ne savent pas prendre.
Et la crucifère ne se contente pas de refuser le champignon, elle le gêne. Ses tissus contiennent des glucosinolates qui libèrent, en se dégradant, des isothiocyanates, ce qui pique dans la moutarde et le raifort, hostiles aux champignons du sol. Schreiner et Koide ont montré en 1993 que les racines vivantes et les extraits de racines de crucifères inhibent la germination des spores mycorhiziennes. Ajoutez au milieu des molécules qui piègent les isothiocyanates, et l’inhibition disparaît, ce qui les désigne comme responsables probables. La démonstration a été faite en conditions contrôlées et elle reste discutée, puisque des plantes riches en glucosinolates comme la capucine ou le papayer se mycorhizent normalement. C’est le principe que l’on appelle biofumigation quand on cherche à s’en servir contre un parasite.
Ici, je dois corriger une idée que je répétais moi-même. La question est simple : une planche de choux laissée en place l’hiver abîme-t-elle le réseau des poireaux qui suivront ? J’ai vérifié les chiffres à la source, et l’effet est plus modeste et plus ambigu que la version militante qui circule. Je donne la réponse tout de suite, les chiffres suivent : ce n’est pas la moutarde qui casse le réseau, c’est la charrue et le sol nu.
Dans l’essai italien le plus souvent cité, la colonisation de la culture suivante atteignait au stade juvénile 35,0 pour cent derrière une vesce velue et 29,4 pour cent derrière un mélange de sept espèces, contre 20,9 pour cent derrière une moutarde indienne. Mais le témoin en végétation spontanée était à 21,3 pour cent, c’est-à-dire au même niveau que la moutarde. La moutarde n’a donc pas fait pire que ce qui poussait naturellement, ce sont la vesce et le mélange qui ont fait mieux. Le potentiel mycorhizogène du sol, c’est-à-dire sa capacité à coloniser une plante test, a bien davantage chuté après la moutarde, de 56,5 pour cent, contre 34 à 47 pour cent après les autres couverts. Un essai japonais conduit sur quatre ans a de son côté trouvé une mycorhization du soja plus faible derrière un colza, non-hôte, que derrière un blé, hôte, l’écart n’apparaissant qu’à partir de la deuxième année de rotation. Et le statut non mycorhizé des crucifères, curieusement, n’est toujours pas complètement expliqué au niveau des mécanismes.
Pendant ce temps, deux travaux indépendants disent la même chose sur le vrai coupable. Un essai lituanien publié en 2026 a pris soin d’échantillonner avant la destruction du couvert, pour ne pas confondre l’effet de la plante avec la libération d’isothiocyanates. Sur de l’orge de repousse, l’intensité de colonisation y était déterminée en premier lieu par le travail du sol, nettement plus élevée en semis direct, sans aucun travail du sol, qu’en labour. Un travail japonais de séquençage arrive à la même hiérarchie sur un autre critère, la composition des communautés mycorhiziennes du maïs étant modifiée par le travail du sol et pas sensiblement par le couvert qui précède.
Une méta-analyse fait la synthèse statistique de tous les essais publiés qui se prêtent à la comparaison. Celle de référence donne l’ordre de grandeur des deux leviers utiles. Sur cinquante-quatre études de plein champ réparties sur cinq continents et deux cent soixante-dix-huit comparaisons, réduire le travail du sol et implanter un couvert d’hiver augmentent chacun d’environ trente pour cent la colonisation de la culture d’été suivante. En travail réduit, la richesse en espèces de champignons gagne 11 pour cent, et les meilleures combinaisons associent semis direct et couvert de légumineuses.
La conclusion pratique change donc de forme. La crucifère est un levier secondaire. La charrue et le sol nu sont les leviers principaux. Un couvert de moutarde en semis direct vaut mieux qu’un couvert parfait suivi d’un labour.
Tous branchés, mais pas au même tarif
Parmi les plantes admises, la dépendance n’est pas égale, et elle se lit à l’œil nu sur la racine, exactement comme sur le poireau du début.
Racines épaisses, peu ramifiées, poils absorbants rares et courts, la plante ne peut pas se passer du champignon. C’est le cas de tous les aulx, poireau, oignon, échalote, ail. C’est le cas de la vigne, de l’olivier, dont la réponse au champignon varie pourtant beaucoup selon le cultivar, des agrumes, du sorgho, de la courge, du melon, du lin, du tournesol, du coton. La carotte, rencontrée en ouverture, appartient au même groupe, et son pivot presque nu dit la même chose que le cordon du poireau. Le kiwi aussi, dont il suffit de dégager un pied pour voir des racines charnues et peu ramifiées. C’est chez moi le premier à décrocher quand l’eau vient à manquer, pour cette raison autant que pour sa surface de feuilles.
Racines fines, chevelu dense, poils nombreux, la plante se débrouille bien mieux seule. Les graminées à gazon sont dans ce cas, et une bonne part des céréales à paille. Elles restent mycorhizées, elles y gagnent, mais elles ne s’effondrent pas si le réseau manque.
Dans un système, on sert d’abord ceux qui ne savent pas se servir eux-mêmes.
Trois réseaux qui ne se parlent pas
Autre règle, moins connue et tout aussi décisive. Il n’existe pas un réseau du sol, il en existe plusieurs, que j’appellerai des circuits, et ils ne se raccordent pas les uns aux autres.
La mycorhize arbusculaire est la plus répandue. Le champignon, un Gloméromycète, pénètre dans la cellule de la racine et y déploie une arborescence minuscule, l’arbuscule, sur laquelle se fait l’échange. Sucres et lipides de la plante contre eau, phosphore, azote, zinc, cuivre. Ces champignons ne fructifient pas, ne font pas de chapeau, ne se ramassent pas au panier. On ne les voit jamais, et c’est pourquoi ils sont si mal aimés. C’est le circuit du pommier, du poirier, du prunier, du noyer, de l’érable, du platane, du cyprès, de l’if, de la vigne, de l’olivier, des agrumes, et de presque tout le potager.
La mycorhize ectotrophe, que l’on appelle aussi ectomycorhize, est la seconde. Là, le champignon n’entre pas dans les cellules. Il enveloppe l’extrémité de la racine d’un manchon et s’insinue entre les cellules du cortex. Ce sont les champignons du panier d’automne, cèpe, girolle, amanite, lactaire, et la truffe qui pousse sous terre. Ce circuit est celui du chêne, du hêtre, du châtaignier, du charme, du bouleau, du noisetier, du pin, de l’épicéa, du mélèze, du cèdre, du tilleul, du ciste.
Un chiffre surprend tout le monde. Les ectomycorhizes ne concernent que 2 pour cent des espèces végétales, mais ces 2 pour cent sont les arbres qui font nos forêts tempérées et boréales. Une poignée d’espèces, une masse végétale considérable. Voilà pourquoi presque toute la littérature sur les réseaux forestiers parle de ce circuit-là, et pourquoi elle ne se transpose pas telle quelle au verger ou au potager.
La mycorhize éricoïde est le troisième circuit, réservé à la bruyère, à la callune, à la myrtille, à l’airelle, au rhododendron. Elle travaille dans des sols acides, pauvres, riches en matière organique mal décomposée, et elle sait y libérer l’azote organique que personne d’autre ne touche.
Vient enfin la mycorhize des orchidées, la plus étonnante, puisque la graine d’orchidée, dépourvue de réserves, ne germe qu’en se laissant coloniser et en se nourrissant, pendant ses premiers mois, aux dépens du champignon.
Deux plantes de circuits différents peuvent voisiner. Elles ne se relient pas. Planter un noisetier près d’un chêne, c’est réunir deux abonnés du même réseau. Semer un tapis de bruyères au pied d’un pommier, c’est mettre côte à côte deux systèmes qui s’ignorent poliment.
Il faut ajouter aussitôt une catégorie que l’on a longtemps prise pour une curiosité, celle des plantes à double abonnement, capables de porter en même temps l’arbusculaire et l’ectotrophe. Le saule et le peuplier en sont les exemples classiques, et cela explique une part de leur robustesse en terrains remaniés. Mais le recensement le plus sérieux, celui de Teste, Jones et Dickie en 2019, retient quatre-vingt-neuf genres confirmés dans trente-deux familles et deux cent trente-huit espèces documentées, après avoir écarté les cas mal établis parmi deux cent onze genres candidats. Le frêne, longtemps rangé parmi les arbusculaires stricts, y figure, comme l’acacia, l’eucalyptus et certains chênes. Ce n’est donc pas une exception, c’est une stratégie répandue.
Trois réseaux, un seul sol
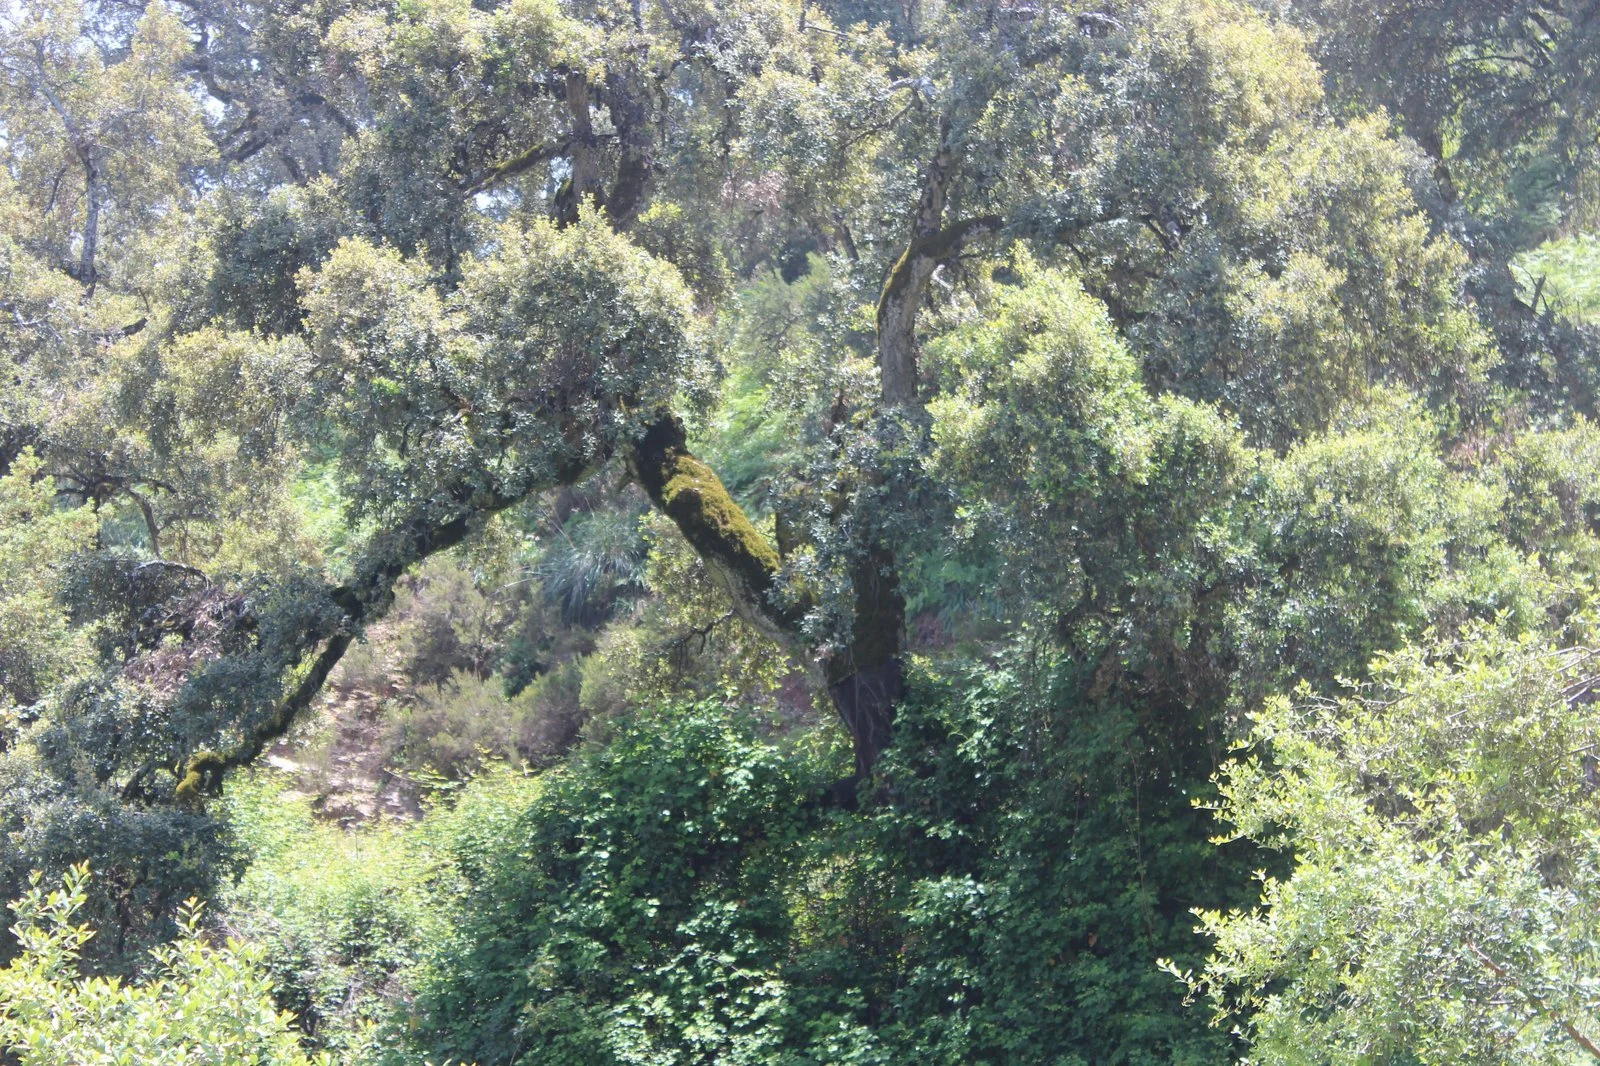
Moyen Atlas. Un vieux chêne vert, son lierre et le palmier nain dans la pente. Le chêne traite avec des champignons à chapeau, le lierre avec d’autres, invisibles. Deux circuits dans la même terre, et personne ne s’en porte plus mal.
Dire que les circuits ne se raccordent pas ne veut pas dire qu’ils s’évitent. Dans la nature, ils se superposent presque toujours, et c’est même la situation ordinaire.
Entrez dans une chênaie au mois d’avril. Les arbres au-dessus de vous travaillent en ectomycorhizes. L’ail des ours, l’anémone, le lierre, la ronce, la jacinthe des bois qui couvrent le sol travaillent en arbusculaire. Deux réseaux entiers occupent le même décimètre cube de terre, puisent dans la même eau, se disputent le même azote, et ne se raccordent jamais. Ajoutez une callune ou une myrtille sous des pins et vous en avez trois empilés.
Cette superposition n’est pas un désordre, c’est un partage du travail. L’éricoïde va chercher l’azote organique bloqué dans les humus acides que personne d’autre ne sait ouvrir. L’ectotrophe attaque la litière et les protéines. L’arbusculaire prospecte le phosphore minéral dans des pores où rien d’autre n’entre. Trois métiers sur trois ressources différentes. Le sous-bois n’est pas un mélange, c’est une répartition des tâches, et c’est pour cette raison que les trois systèmes tiennent côte à côte au lieu de s’exclure.
La cohabitation se produit aussi sur une seule plante. Le saule et le peuplier portent les deux circuits en même temps, plutôt arbusculaire quand ils sont jeunes, de plus en plus ectotrophe avec l’âge. L’aulne, double lui aussi, ajoute par-dessus ses nodules à Frankia. Ce sont des excroissances racinaires en forme de corail, parfois grosses comme le poing, où loge une bactérie qui fixe l’azote de l’air, comme celle des légumineuses. Trois partenaires sur une seule racine. Sur ces espèces, le mot association prend son sens littéral : la même racine loge plusieurs métiers.
Chez elles, la balance entre les deux circuits n’est pas fixée une fois pour toutes, elle suit les conditions. Le jeune plant part souvent en arbusculaire, moins coûteux et plus vite disponible, puis bascule vers l’ectotrophe en grandissant. La sécheresse et l’excès d’eau poussent l’un comme l’autre vers l’arbusculaire, parce que le champignon ectotrophe supporte mal un sol mal aéré. Et surtout, la présence d’un partenaire commande. Des glands de chêne rouge semés au pied d’érables rouges, qui sont des hôtes arbusculaires, ont donné des semis largement colonisés par des champignons arbusculaires, quand les mêmes glands semés auprès de rejets de chêne restaient franchement ectotrophes. Le double abonnement fonctionne donc comme une assurance, il prend le circuit que le voisinage lui offre. Les auteurs ajoutent une réserve honnête, ils n’ont mesuré aucun gain de croissance lié à la voie arbusculaire. C’est un argument de plus pour adosser une plantation à un hôte résident plutôt que de la poser seule en terrain nu.
Et elle se produit jusque dans la racine elle-même. Une seule racine de trèfle héberge couramment plusieurs espèces de Gloméromycètes à la fois. Un seul chêne peut porter des dizaines d’espèces ectotrophes différentes selon l’âge et la position de ses apex. Les hyphes, ces filaments qui composent le corps du champignon, se croisent en permanence dans le sol, mais elles ne fusionnent qu’entre individus compatibles de la même espèce. Se croiser n’est pas se raccorder. Toute la nuance est là, et c’est elle qu’il faut retenir avant de dessiner un plan de plantation.
Restent les vraies passerelles, qui sont les cas les plus beaux. L’arbousier et la busserole possèdent une mycorhize particulière, dite arbutoïde, qui les branche sur des champignons ectotrophes, c’est-à-dire sur le réseau des arbres voisins. La monotrope des pinèdes fait de même, mais en parasite, sans une feuille verte. Et beaucoup d’orchidées de nos forêts, céphalanthères, épipactis, ne sont vertes qu’à moitié au sens métabolique : elles tirent une part de leur carbone du réseau ectotrophe des arbres, ce que l’on appelle la mixotrophie, un domaine largement défriché en France par Marc-André Selosse. Là, deux circuits communiquent réellement.
La règle se dit donc mieux ainsi. Les circuits ne se raccordent pas entre eux, sauf chez quelques espèces charnières qui ont appris à brancher deux systèmes. Et cette absence de raccordement n’empêche pas la cohabitation, elle l’organise.
Pour le concepteur, la conséquence est réjouissante. Un jardin qui superpose délibérément des circuits, arbres d’un métier, strate basse d’un autre, exploite davantage de compartiments du sol qu’une plantation homogène. Ce n’est pas de la biodiversité décorative, c’est de la couverture de ressources.
Le nord mine, le sud prospecte
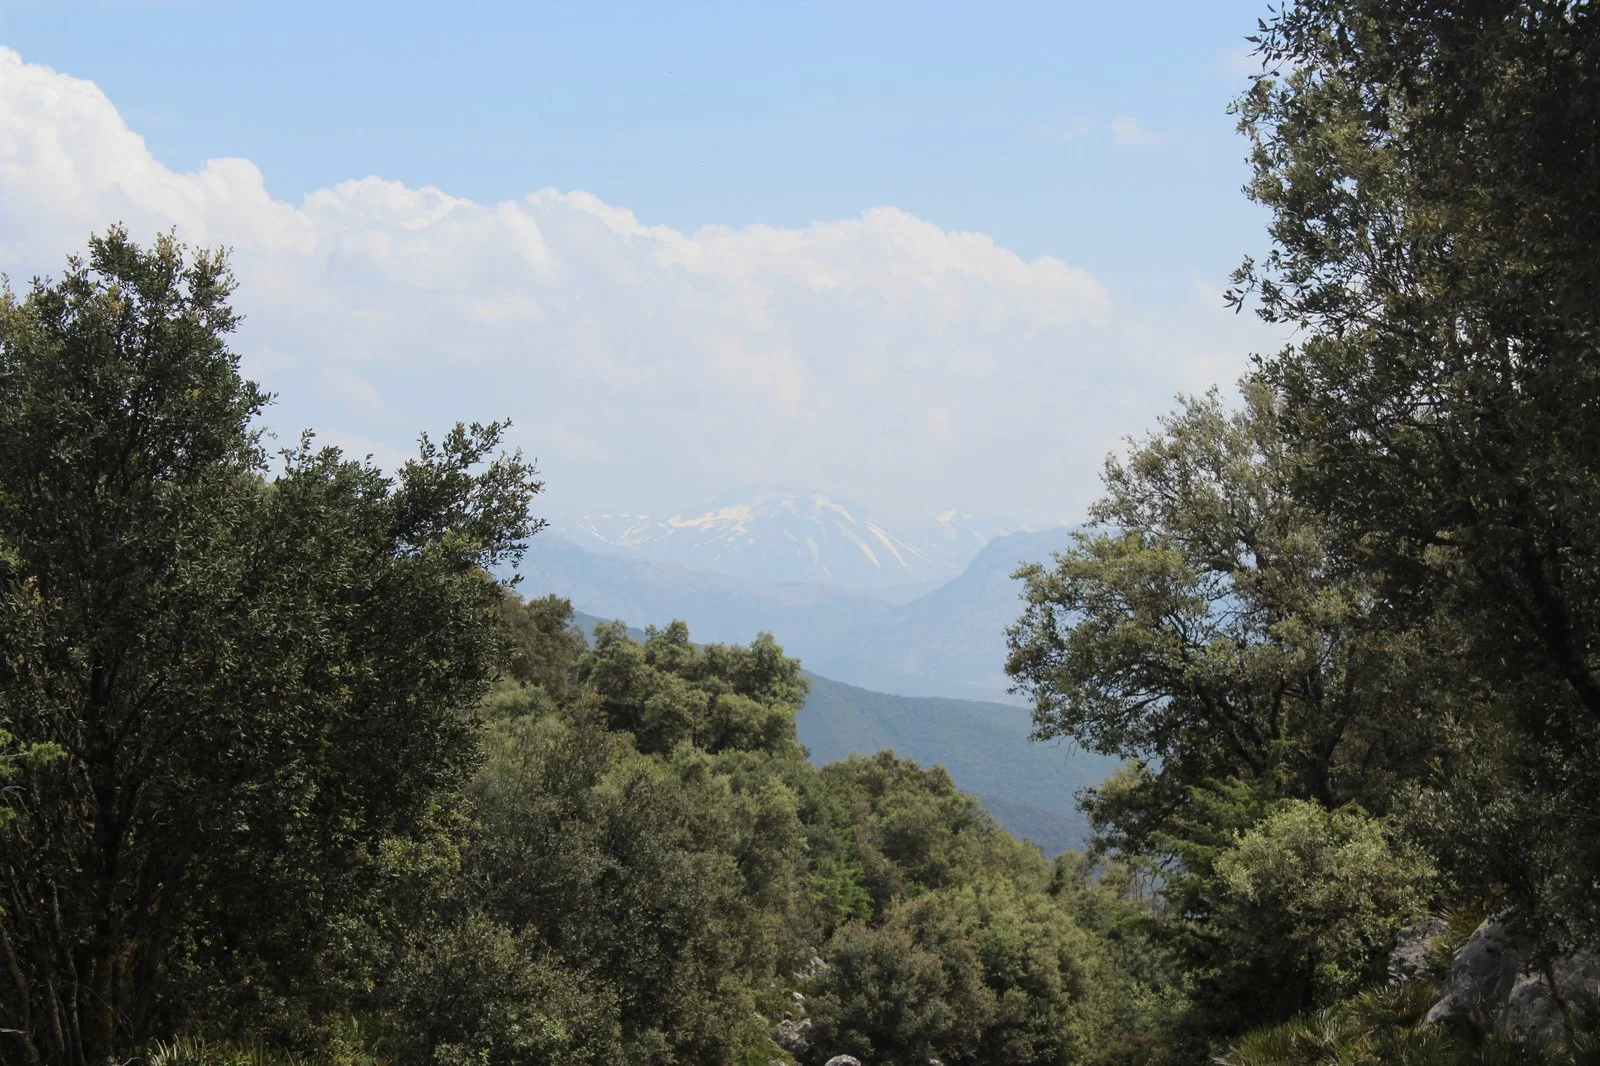
Moyen Atlas. Chênaie verte de montagne, névés au fond. Ici, ce n’est pas le froid qui commande le circuit souterrain, c’est l’été sec.
Pourquoi trois circuits plutôt qu’un seul, et pourquoi celui-ci plutôt que celui-là. La réponse existe, elle est mondiale, et elle est bien plus utile qu’on ne le croit.
Un travail publié dans Nature en 2019, portant sur les quelque trois mille cent milliards d’arbres de la planète, a cartographié le partage. Les arbres ectotrophes, qui ne représentent que 2 pour cent des espèces végétales, constituent environ 60 pour cent des troncs de la Terre. Ils dominent partout où un climat saisonnièrement froid ou sec freine la décomposition, c’est-à-dire aux hautes latitudes et en altitude. Les arbres arbusculaires dominent les forêts tropicales chaudes et sans saison marquée, et cohabitent avec les ectotrophes dans nos zones tempérées, où la saison chaude et humide accélère la décomposition. Les transitions entre les deux sont brutales plutôt que graduelles, et pour une raison simple : la litière d’un arbre ectotrophe se décompose mal, ce qui entretient précisément les conditions qui favorisent l’ectotrophe. Le système fabrique le sol qui le confirme.
La chimie sous-jacente est simple. Au nord, en sols jeunes, souvent remaniés par les glaciers, l’azote commande, et il est enfermé dans une matière organique que le froid empêche de minéraliser, c’est-à-dire de décomposer jusqu’aux éléments que la racine peut boire. Or les champignons ectotrophes et éricoïdes descendent d’ancêtres décomposeurs et ont conservé une partie de leur outillage enzymatique. Ils vont chercher l’azote organique directement, sans attendre le minéralisateur. C’est un travail de mineur. Au sud, en sols anciens et profondément altérés, l’azote circule vite mais le phosphore est bloqué sur les oxydes de fer et d’aluminium. Le champignon arbusculaire, dépourvu ou presque de capacité enzymatique, est en revanche un explorateur hors pair du phosphore minéral. C’est un travail de prospecteur.
Deux stratégies pour deux verrous. Le nord mine, le sud prospecte.
Maintenant, la règle n’est pas une règle de latitude, et il faut le dire nettement, sinon elle vous égarera. Le facteur n’est pas la chaleur, c’est le blocage de la décomposition, et la sécheresse produit le même effet que le froid. Voilà pourquoi tout le pourtour méditerranéen, franchement au sud, reste un pays ectotrophe : chêne vert, chêne liège, chêne kermès, cèdre de l’Atlas, pins, cistes, avec la truffe pour signature. À l’inverse, les tropiques ont leurs exceptions ectotrophes, les diptérocarpes d’Asie du Sud-Est et certaines césalpiniées africaines, souvent installées sur les sables les plus pauvres, où elles forment des peuplements presque purs.
La même étude apporte un dernier résultat, et c’est celui que je retiens pour mon propre travail. Les fixateurs d’azote symbiotiques échappent à ce contrôle climatique de la décomposition, et ils culminent dans les biomes arides à sols alcalins et à températures maximales élevées. Le levier fixateur est donc un levier du sud sec et calcaire. Là où le froid ne bloque rien, là où la litière disparaît en une saison, là où le phosphore est verrouillé, la nature elle-même mise sur le nodule.
Traduisons cela pour deux terrains que je connais.
En France tempérée, on travaille dans une zone de mélange. Les arbres de forêt sont ectotrophes, presque tout le reste est arbusculaire, et le facteur historiquement limitant, l’azote, a été noyé sous les apports depuis un siècle tandis que le phosphore soluble s’accumulait. Le levier principal n’y est pas d’ajouter, il est d’arrêter d’éteindre la symbiose par la fertilisation et par le labour.
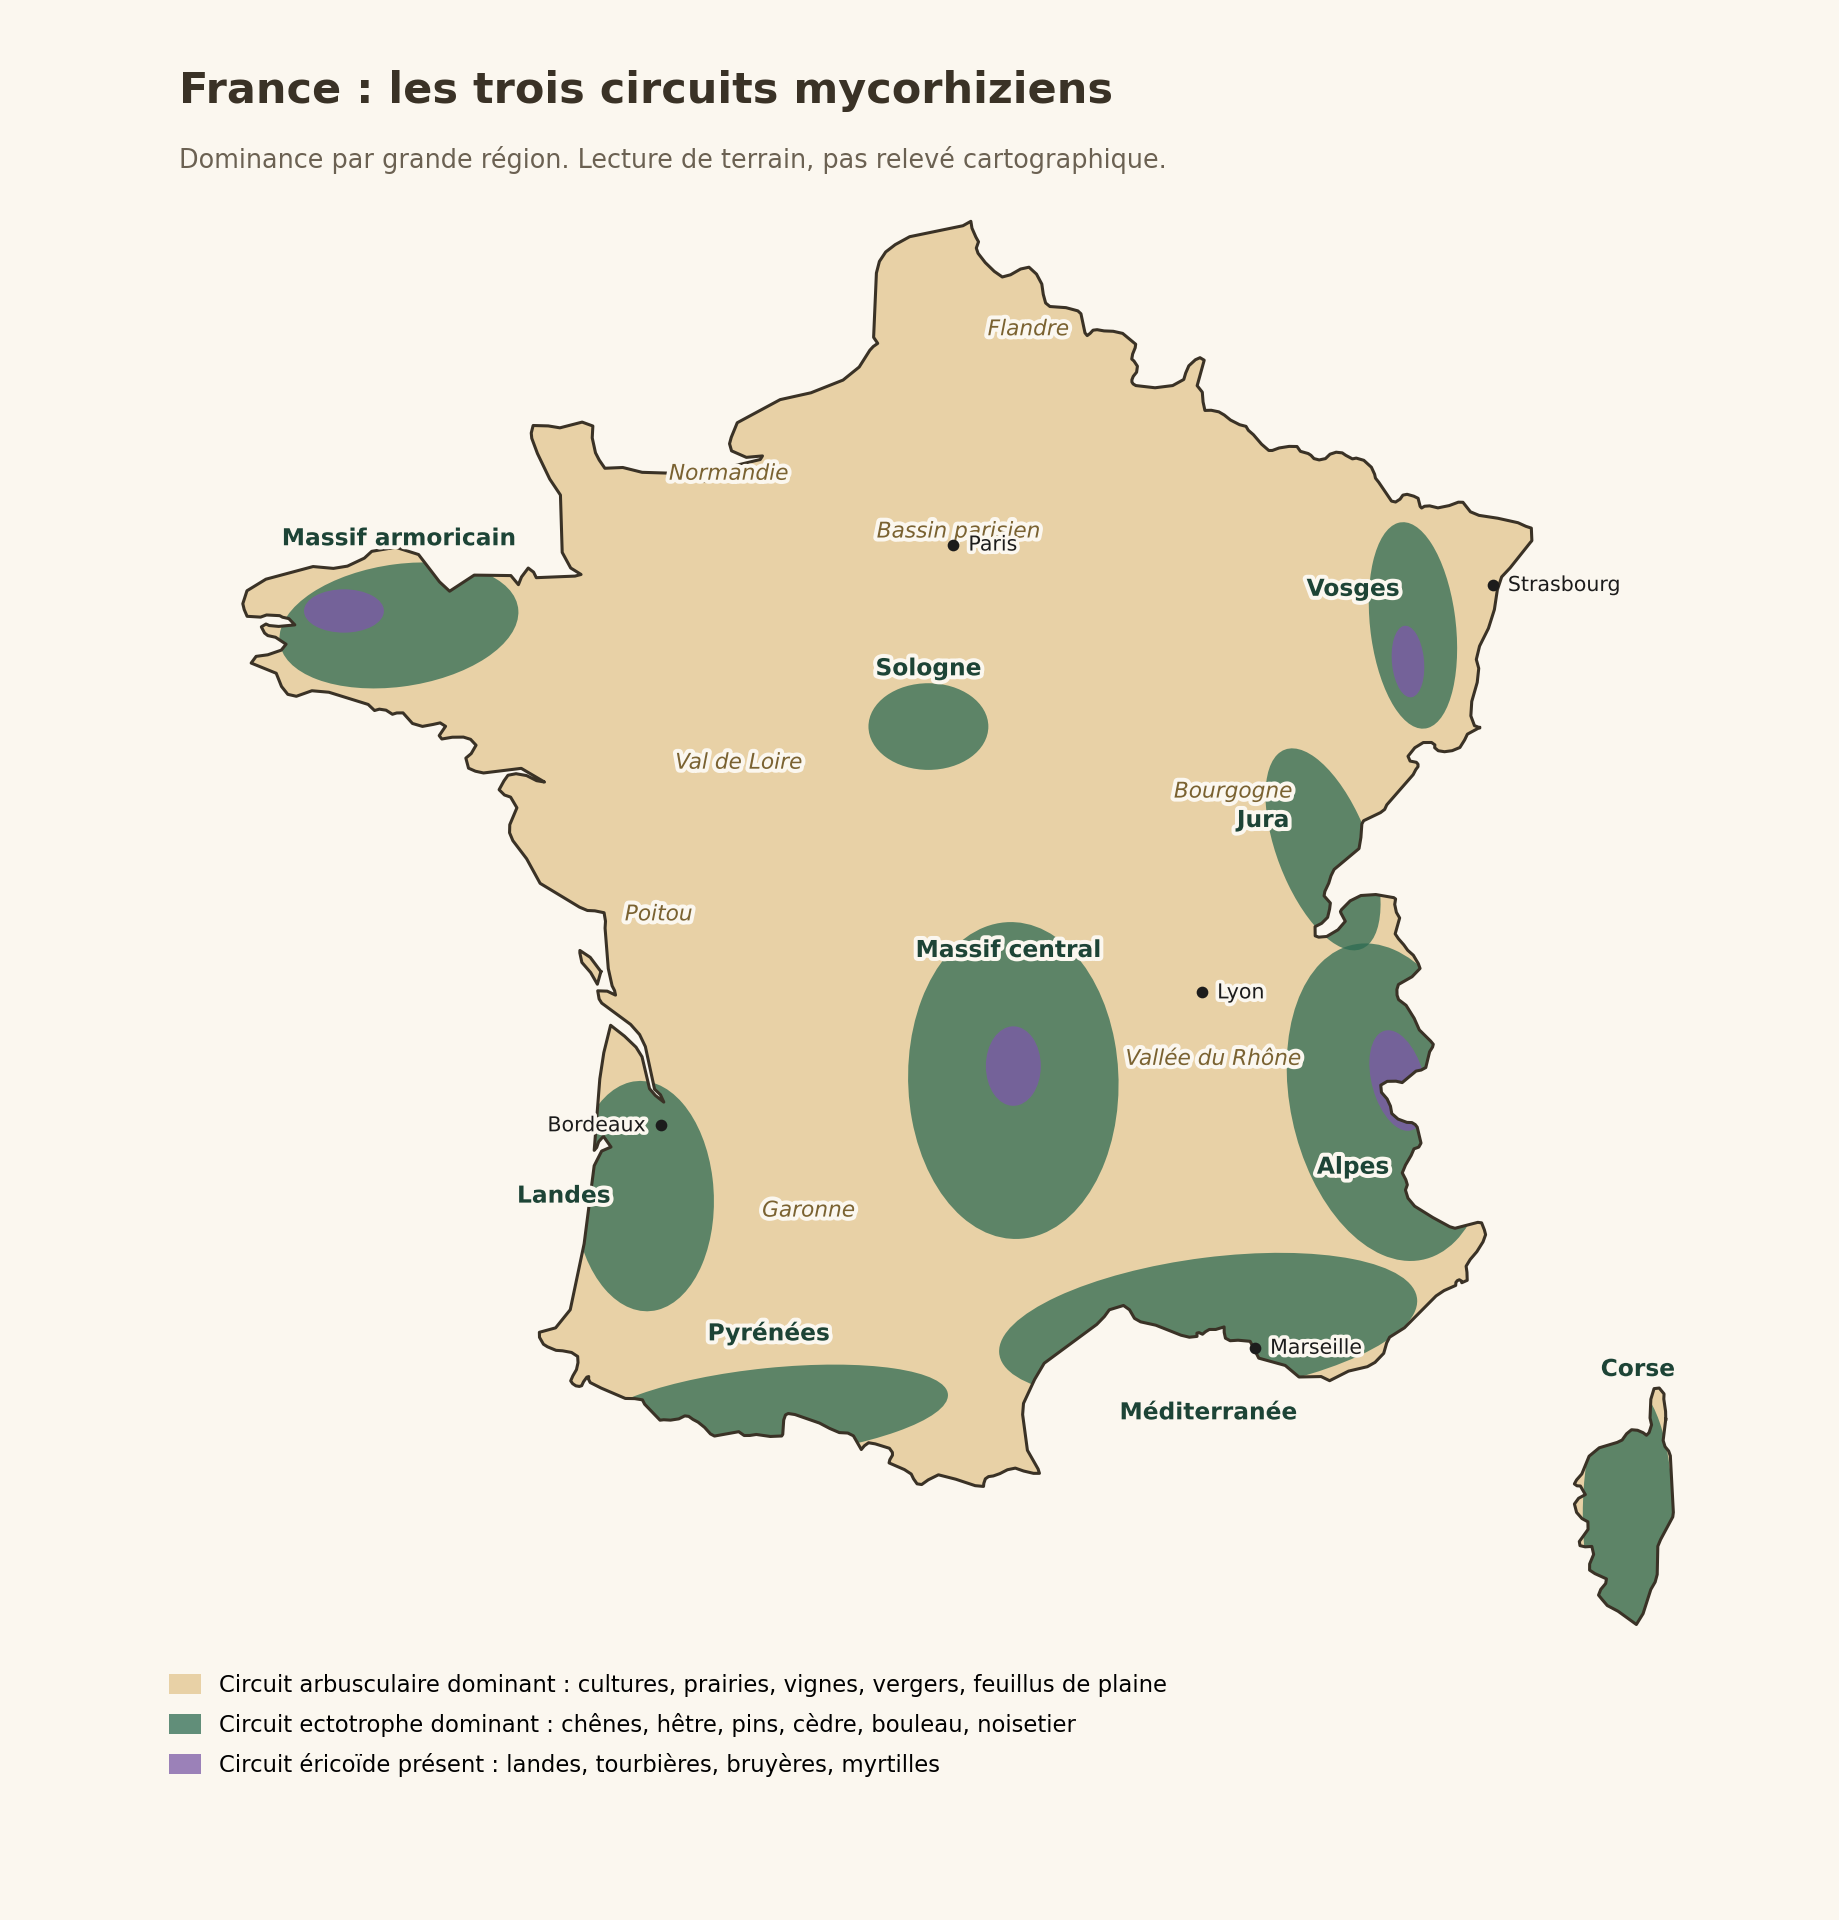
France. En sable, le fond arbusculaire des cultures, prairies, vignes et vergers. En vert, les massifs ectotrophes. En violet, le circuit éricoïde.
Au Maroc, la chimie n’est pas celle des tropiques, même si la chaleur y ressemble. Le phosphore n’y est pas bloqué par le fer et l’aluminium mais par le calcium, à pH élevé, en sols carbonatés. Même verrou, autre serrure. Le circuit arbusculaire y reste la clé du potager et des cultures, l’ectotrophe celle des chênaies et des cédraies, et la légumineuse fixatrice y a une valeur que les tableaux d’associations français sous-estiment lourdement. Ajoutez deux choses. La contribution du champignon au transport de l’eau pèse d’autant plus lourd que le sol se dessèche. Et le stock de propagules s’épuise selon toute vraisemblance plus vite en sol nu et chaud qu’en sol nu et frais. Ce sont les spores, les fragments de champignon et les racines colonisées capables de repartir, et ce que j’en dis là, je le tiens de l’observation et non d’une mesure. La plante relais, j’y consacre un chapitre de la seconde partie, est une plante hôte laissée en place pour tenir le réseau allumé entre deux cultures. En France, c’est une bonne pratique. Au Maroc, c’est une condition de survie du réseau.
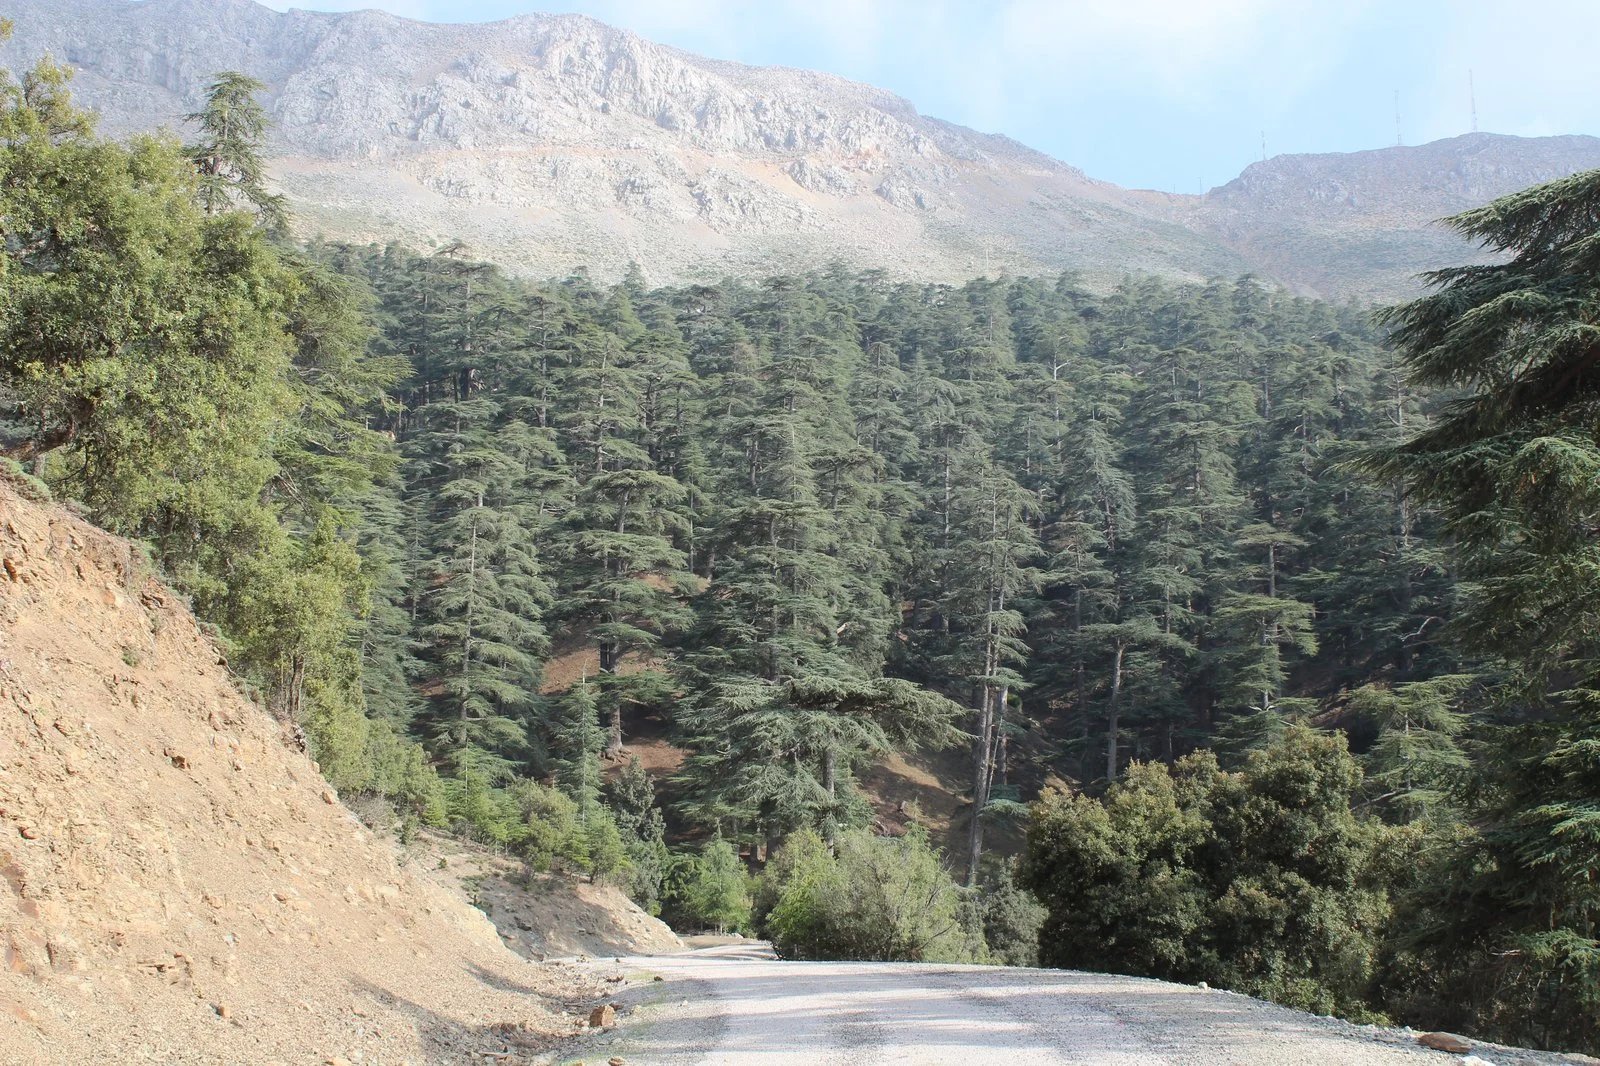
Moyen Atlas. À droite, cèdre et chêne vert branchés depuis des siècles sur les mêmes champignons. À gauche, un talus de piste sans une racine. La même essence n’aura pas le même destin selon le côté où on la plante.
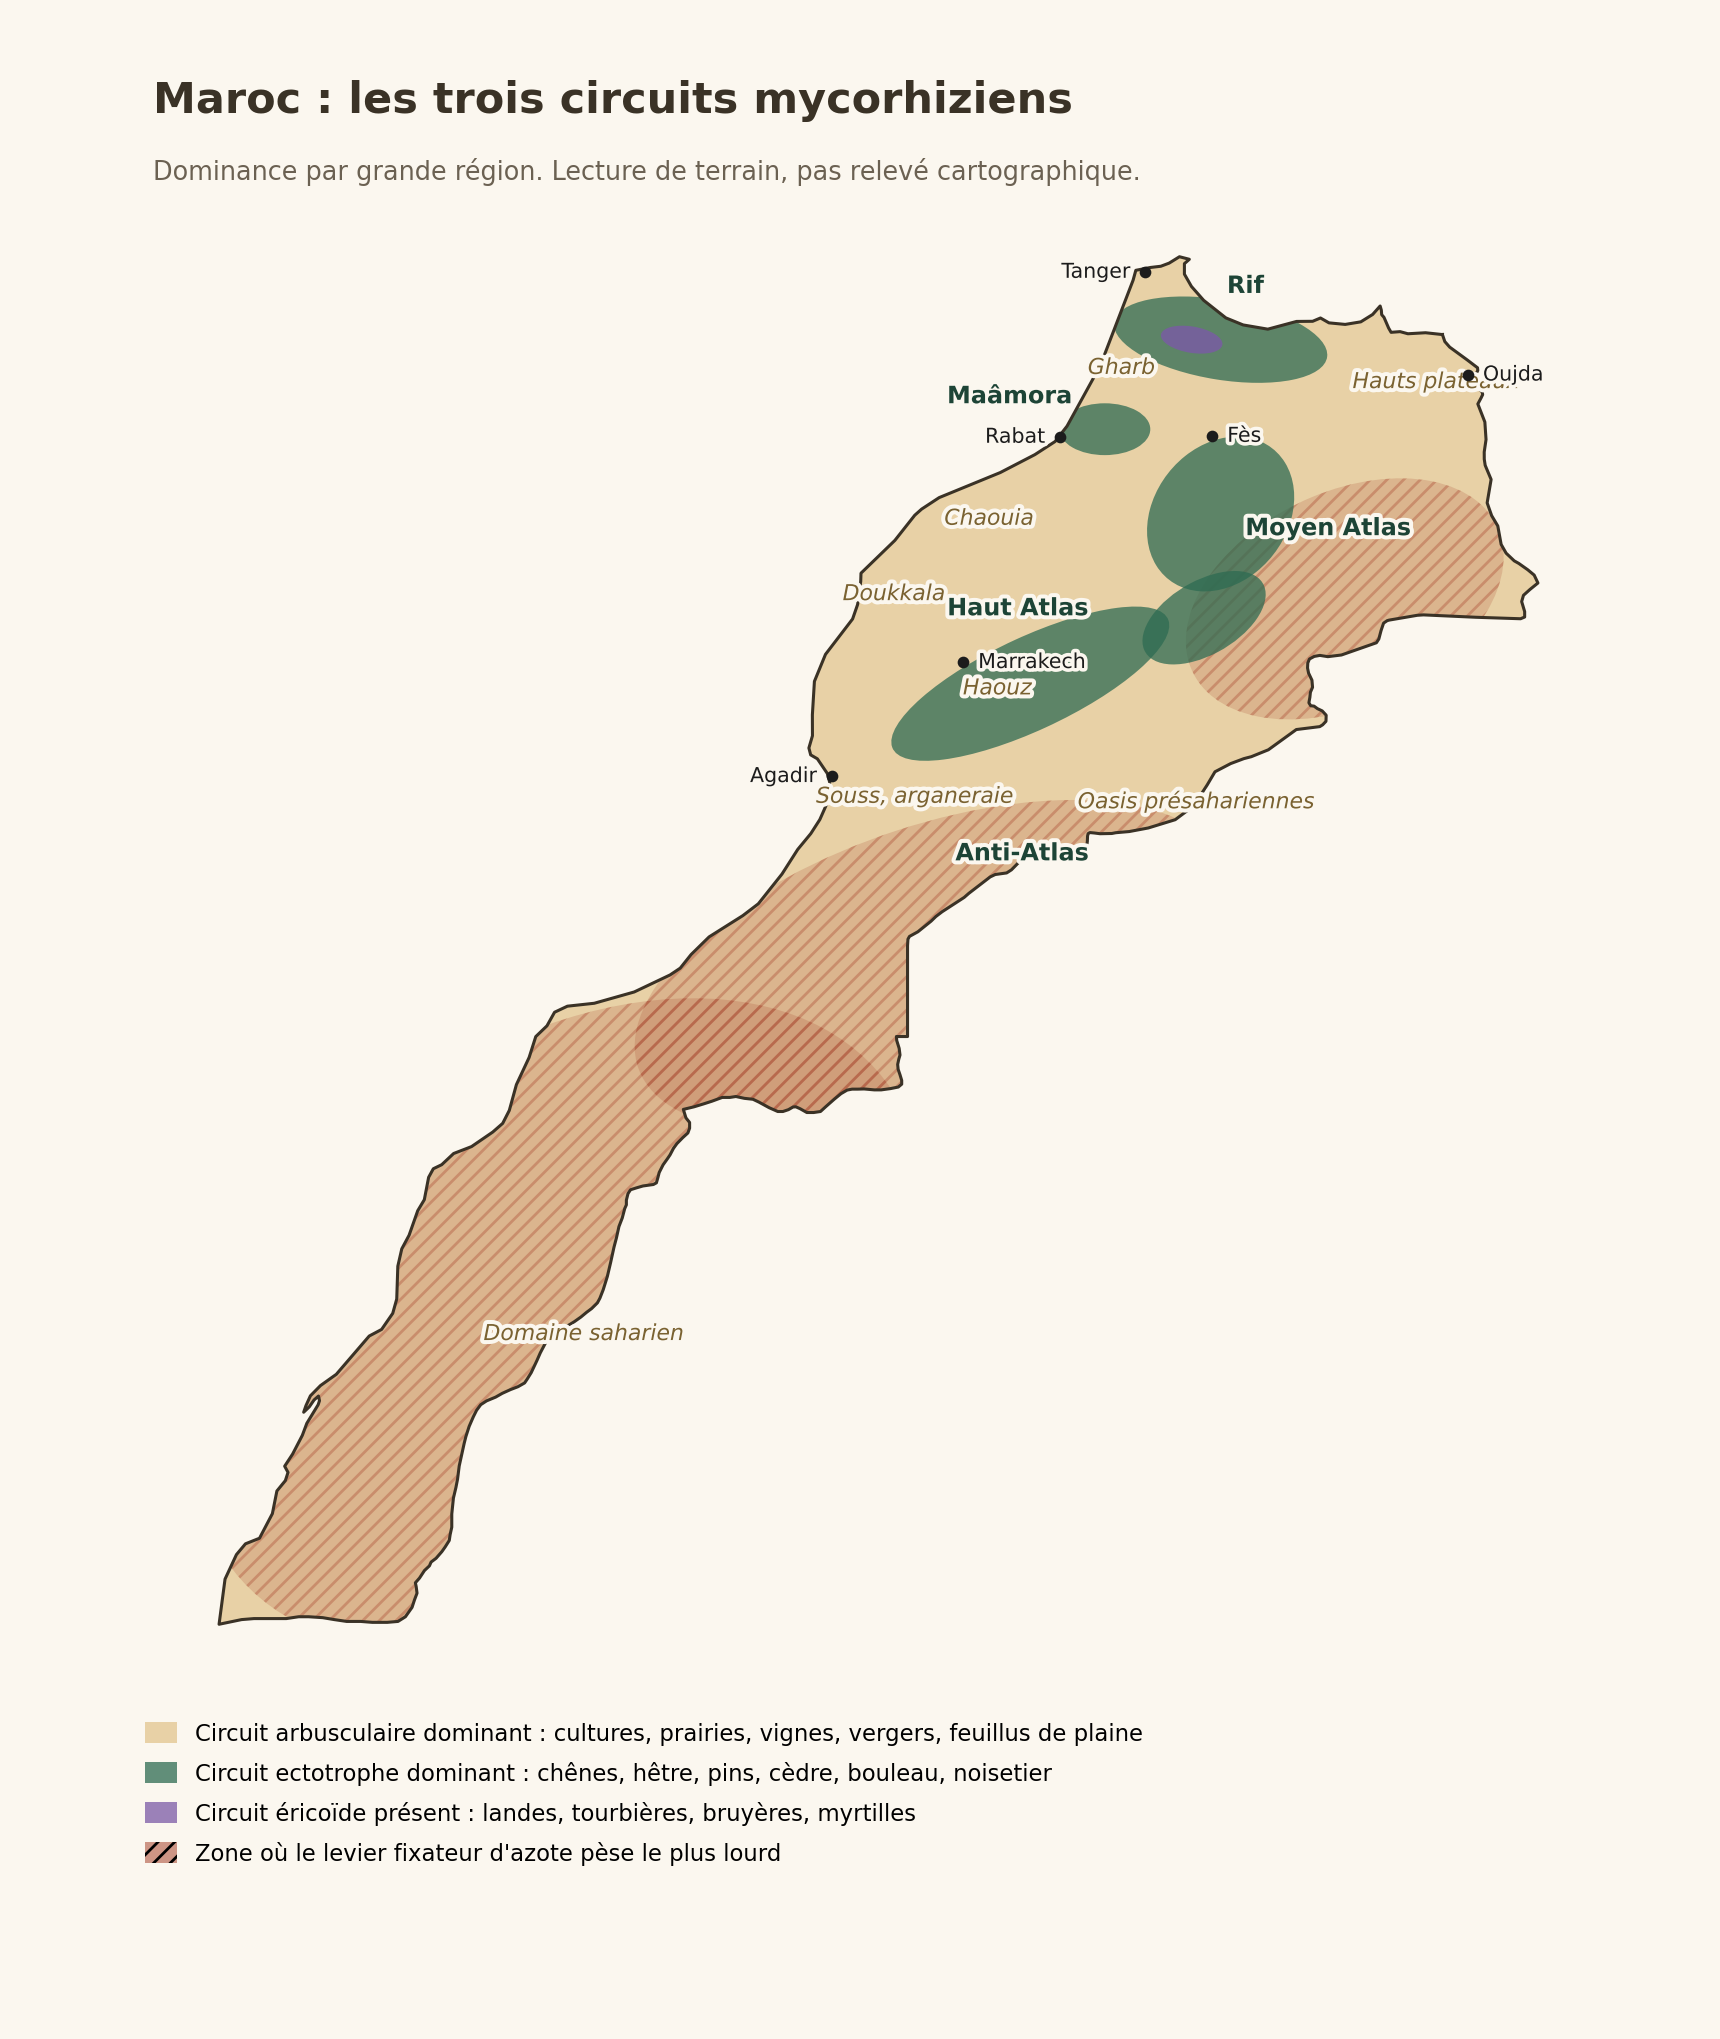
Maroc. Mêmes couleurs, plus une trame hachurée : là où la fixation d’azote pèse le plus. L’ectotrophe se réduit à un ruban, Rif, Maâmora, Moyen et Haut Atlas. Tout le reste relève de l’arbusculaire et des fixateurs.
Placées côte à côte, les deux cartes disent l’essentiel en une seconde. Je les ai dessinées sur les contours de la base Natural Earth, sans limite administrative ajoutée, et les zones de dominance sont une lecture de terrain, pas un relevé cartographique. La France est un fond agricole percé de massifs. Le Maroc est un fond aride bordé d’un liseré forestier. Ce contraste de proportions vaut tous les discours sur l’adaptation des palettes végétales.
Un dernier résultat mérite d’être posé ici, parce qu’il commande les choix d’essences pour les décennies qui viennent. En comparant plus de quatre cents genres d’arbres à l’échelle du globe, Rog et ses coauteurs ont montré en 2025 que les espèces à double abonnement occupent une aire géographique et climatique plus vaste que celle des arbusculaires stricts et des ectotrophes stricts. Cela vaut indépendamment de leur parenté, avec un avantage marqué vers les climats secs. Ce sont elles qui franchissent le mieux les frontières.
Une précision s’impose avant de transposer, car le résultat est mesuré sur le sec et nos hivers ne le seront pas. Sous nos latitudes, ce qu’il faut retenir n’est pas l’aridité, c’est l’amplitude. L’hiver arrose et noie, l’été dessèche, et ces deux extrêmes chassent l’ectotrophe pour la même raison de fond : il lui faut un sol aéré, qu’un excès d’eau lui refuse autant qu’un dessèchement. La plante à double abonnement garde donc une option ouverte aux deux bouts de l’année, sur le sol gorgé de février comme sur le sol cuit d’août. C’est cela qui en fait une candidate sérieuse pour un climat qui bouge, et non le fait qu’elle supporterait le sec.
Le nord et le sud ne sont donc pas deux mondes. Ce sont deux façons d’être pauvre, et deux façons d’acheter ce qui manque.
Le sol se souvient, et il ne se souvient pas de tout
On se représente volontiers le sol comme un décor fixe sur lequel la végétation défile. C’est l’inverse. Le sol est en grande partie le produit de ce qui pousse dessus, il enregistre chaque bascule, et il en garde certaines définitivement.
La démonstration la plus complète est parue en 2025 dans Science Advances. Une carotte de sédiment prélevée dans le lac Lama, en Sibérie centrale, au pied d’un plateau de basalte, couvre vingt-trois mille ans. Les auteurs y ont séquencé l’ADN ancien de tout ce qui s’est déposé, plantes, champignons et bactéries ensemble, en vérifiant sur les lectures les altérations chimiques qui prouvent qu’elles sont anciennes et non modernes. C’est la première fois que l’on suit la fabrication d’un sol comme on suit un film, au lieu de la déduire en comparant des sols d’âges différents.
Le film raconte une histoire de partenaires. Au Tardiglaciaire, une toundra, des lichens en abondance, une altération brutale du basalte par les acides qu’ils sécrètent, et des bactéries occupées à oxyder l’arsenic que la roche libère. Le cycle du carbone commande. Puis l’Holocène arrive, le mélèze s’installe, les lichens reculent, les mycorhizes prennent le relais pour une altération plus fine, et c’est le cycle de l’azote qui commande.
Vient ensuite l’épicéa, et le sol change de nature. Litière difficile à digérer, acidification, migration du fer et de l’aluminium vers la profondeur, montée des bactéries du fer. Le podzol se forme, ce sol lessivé, gris et acide en haut, rouillé en dessous, là où le fer est descendu. Quand le mélèze revient au cours de l’Holocène tardif, il ne retrouve pas le sol qu’il avait quitté. Il revient sur un podzol, avec cette fois la myrtille en accompagnement, qui n’était pas là la première fois.
Le détail fongique est le plus parlant. Les Suillineae, champignons ectotrophes associés au mélèze, apparaissent avec lui à l’entrée de l’Holocène, disparaissent pendant toute la phase à épicéa, et reviennent avec le second mélèze. Les Hyaloscypha, du côté éricoïde, montent en même temps que la myrtille. Le partenaire suit l’arbre dans la carotte, sur des millénaires, exactement comme il le suit dans une fosse de plantation.
La première leçon est encourageante. En analysant ce qui explique la composition des communautés souterraines, les auteurs trouvent que c’est la végétation qui pèse le plus, la température ensuite, et que le temps écoulé depuis la déglaciation ne pèse presque rien. Un sol n’est donc pas vieux ou jeune, il est habité ou mal habité. Changez le couvert et la communauté suit, ce qui est précisément ce que l’on cherche à faire sur un terrain abîmé.
La seconde est sévère, et elle tire en sens inverse. La podzolisation, elle, ne s’est pas inversée quand la végétation a changé. Elle est allée dans un sens et n’est pas revenue. Le même enchaînement, forêt puis lande puis podzol, est le scénario classique des sols acides du nord-ouest européen, et il produit parfois une dalle ferrique que rien ne défait. Le sol suit le couvert pour tout ce qui est biologique, et il ne le suit plus pour ce qui est devenu chimique et minéral.
On lit cette mémoire dans les sédiments de lac, par les pollens et par l’ADN ancien, ce qui est un travail de laboratoire. Dans les herbiers, par les isotopes de l’azote. L’azote existe en deux versions de poids légèrement différent, et chaque voie de transfert laisse dans la feuille sa proportion propre, comme une empreinte. Le résultat est troublant : sur quatre cent quatre-vingt-treize échantillons du Minnesota récoltés entre 1871 et 2016, l’écart isotopique caractéristique qui sépare une feuille d’arbre ectotrophe d’une feuille d’arbre arbusculaire s’est réduit de plus de moitié en un siècle et demi. La signature du circuit s’efface, ce qui veut dire que le transfert d’azote par le champignon ne fonctionne plus comme avant. Cette signature n’a rien d’anecdotique : à l’échelle du globe, elle classe les plantes dans un ordre net, les non mycorhizées en haut, puis les arbusculaires, les ectotrophes, et les éricoïdes tout en bas. Les auteurs précisent d’ailleurs que le déclin de l’azote touche tout le monde, les deux circuits et les champignons eux-mêmes, et qu’il ne s’explique pas par le type de mycorhize. Ce n’est pas une divergence, c’est un appauvrissement général.
Une seule lecture tient dans un sac à dos, et c’est celle que je pratique. Le sol garde le registre de ses hivers dans sa couleur. Taches rouille sur fond gris, horizon gris bleuté en profondeur, et surtout la profondeur à laquelle ces marques apparaissent. En France, cette lecture est normée par arrêté et opposable, le guide ministériel d’identification des sols de zones humides en donne les classes. Une tarière, cette vrille à main qui remonte une carotte de terre, une matinée, et vous savez si l’eau stationne depuis toujours, depuis les travaux, ou seulement les années humides. Presque personne ne le fait avant de dessiner une palette végétale.
Le climat bascule vite, la végétation suit plus lentement, et le sol garde longtemps la trace du régime précédent. On ne plante jamais dans le climat annoncé, on plante dans un sol qui appartient encore au climat d’avant.
Le réseau porte de l’eau, et c’est mesuré
Le réseau porte de l’eau, et ce point a longtemps manqué de preuves directes. On savait que les plantes mycorhizées supportaient mieux la sécheresse. On ne savait pas si le champignon leur apportait vraiment de l’eau ou s’il agissait par des voies indirectes, meilleure nutrition, régulation des stomates, ces pores de la feuille, structure du sol.
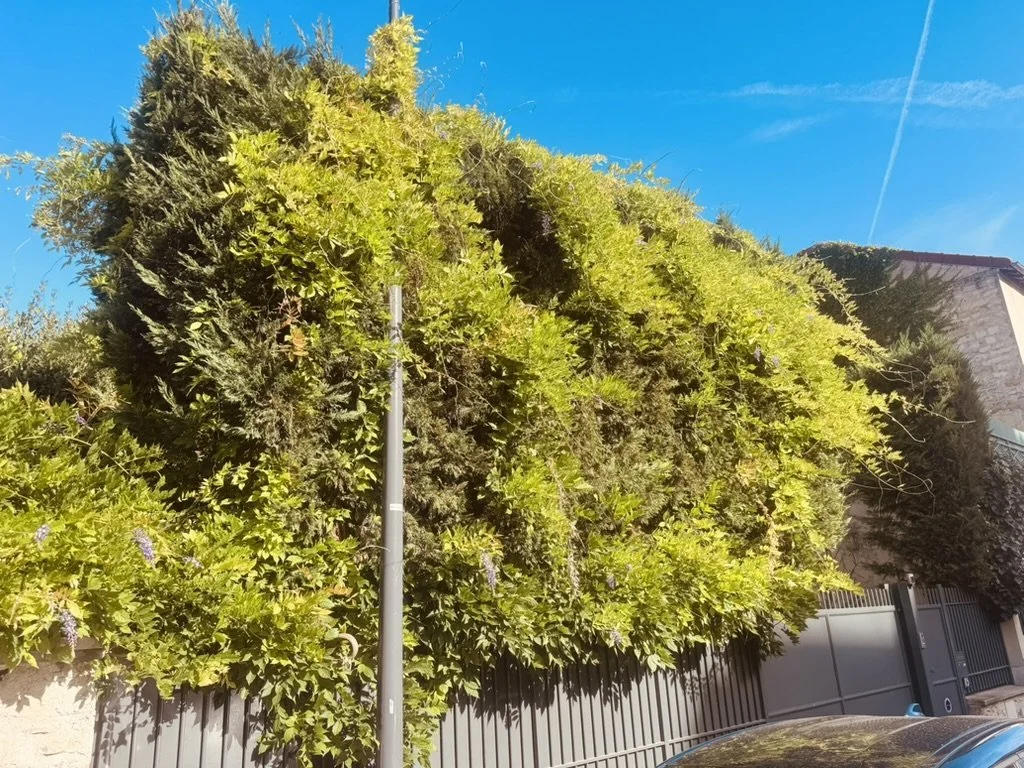
Meudon. Une glycine en fleurs en pleine canicule d’août, le long d’une rue. Une plante qui manque d’eau renonce d’abord à ses fleurs. Celle-là n’a pas renoncé. Entre deux sols fermés, quelque chose l’abreuve encore.
La démonstration est venue en 2022. Kakouridis et son équipe ont cultivé une avoine sauvage dans un dispositif à deux compartiments séparés par une lame d’air de trois millimètres, infranchissable pour les racines, franchissable pour les hyphes. Ils ont ensuite injecté dans le compartiment sans plante de l’eau marquée à l’oxygène 18 accompagnée d’un colorant fluorescent incapable de traverser une membrane cellulaire. Les plantes reliées ont transpiré près du double des plantes témoins, l’eau marquée s’est retrouvée dans leur transpiration, et le colorant a été observé sur les hyphes jusque dans les racines. La contribution du champignon a été estimée à 34,6 pour cent, plus ou moins 10,5, du flux transpiré. Une partie du transport se fait donc à l’extérieur de la membrane des hyphes, le long des parois, entraînée par la succion foliaire.
Restons honnêtes sur l’ordre de grandeur. Des dispositifs comparables plus anciens estimaient la contribution entre 4 et 20 pour cent, et un travail à l’eau deutérée publié en 2020 concluait à des volumes faibles au regard de la demande des plantes. Les auteurs de l’étude de 2022 écrivent eux-mêmes que leur chiffre est probablement dans le haut de ce qui se produit au champ. Ce qui est acquis, c’est que le transport existe, qu’il persiste quand le sol s’assèche, et que les hyphes franchissent des vides remplis d’air pour maintenir la continuité hydraulique. Ce qui n’est pas acquis, c’est le chiffre.
La raison physique, elle, est solide et vaut d’être retenue. Racines et poils absorbants travaillent dans les pores de quelques dizaines de micromètres, ceux qui se vident les premiers quand le sol sèche. Les hyphes, épaisses de deux à dix micromètres, entrent dans des pores de quelques micromètres, ceux qui restent pleins d’eau le plus longtemps. Le champignon ne va pas chercher plus loin, il va chercher plus fin.
Pour le praticien, cela suffit largement. Ces hyphes forment dans le sol un lacis de filaments invisible à l’œil nu, le mycélium. Un sol dont le mycélium est intact met la plante en communication avec une eau que ses racines ne toucheront jamais. Un sol labouré chaque année ne le fait pas.
L’hiver noie plus souvent qu’il ne gèle
Tout ce qui précède parle de sécheresse. C’est le réflexe du métier, et c’est son angle mort. Sous nos latitudes, ce qui tue le réseau n’arrive pas en août. Cela arrive en novembre, et cela dure jusqu’en avril.
Un champignon ectotrophe est un organisme aérobie. Sa partie utile, le mycélium qui court dans le sol loin de la racine, a besoin d’oxygène en permanence. Une semaine d’eau ne le tue pas. Une saison entière sans air, oui. Le gel de surface, bref sous nos climats, lui coûte bien moins cher. Les travaux sur les plantes à double abonnement le montrent en creux : partout où le sol est engorgé, chez le peuplier, chez le saule, chez le chêne des marais, la colonisation bascule vers l’arbusculaire, et elle y bascule aussi en sol trop sec. Les deux extrêmes produisent le même résultat pour la même raison de fond, un sol qui ne respire plus ou une eau qui manque.
Au-dessus du sol, en revanche, le gel fait plus de dégâts que jamais, et il les fait par ce qui le précède. Une semaine à dix-huit degrés en février désacclimate l’arbre, c’est-à-dire lui fait perdre la résistance au froid qu’il avait acquise, et lance sa végétation. Un banal moins trois en mars détruit alors des tissus qui n’auraient jamais dû être sortis. Le nombre de gelées diminue et l’exposition des plantes augmente, c’est ce que je constate sur mes propres fruitiers. Une saison qui ne tient plus son rôle de saison, comme dans le sol, sauf qu’ici cela se joue dans les bourgeons.
Le pire est le calendrier. Sous climat océanique, les racines des feuillus continuent de pousser tant que le sol reste au-dessus de cinq degrés, lentement il est vrai, et elles ne retrouvent leur plein régime qu’au-delà de dix. L’hiver doux devrait donc être une saison utile sous terre. L’engorgement la supprime. L’été sec supprime l’autre. Il reste le printemps et le début de l’automne. Autrement dit le réchauffement ne déplace pas la fenêtre biologique vers le haut, il la pince aux deux bouts.
Le compactage fait toute la différence entre un sol qui ressuie lentement et un sol qui asphyxie. Un sol tassé par les engins de chantier puis saturé pendant six mois devient anoxique, c’est-à-dire privé d’oxygène. Le champignon arbusculaire encaisse mieux l’engorgement que l’ectotrophe, mais pas sans limite, et la racine fine du platane, elle, ne supporte pas six mois sans air. Le réseau meurt sans que rien ne se voie en surface. L’arbre décline trois ou cinq ans plus tard, et l’on accuse la canicule de l’été précédent. Les deux platanes du début de cet article se séparent souvent là, et pas au mois d’août.
Cela change aussi le choix des essences, d’une façon qui surprend. Un chêne pédonculé encaisse très bien un sol détrempé en tant qu’arbre. Ses partenaires ectotrophes, eux, reculent. L’arbre peut alors basculer en partie vers l’arbusculaire, comme le font les glands de chêne rouge semés au pied des érables. Ce n’est pas neutre : il perd l’accès à l’azote organique que seul l’ectotrophe sait ouvrir. Il survit, il ne travaille plus de la même manière. Sur les terres lourdes, l’arbusculaire strict perd moins, puisqu’il n’a jamais eu l’autre circuit. L’espèce à double abonnement perd la même chose que le chêne, mais elle ne passe pas par une phase débranchée, puisque son second circuit était déjà en service. C’est cette continuité que les tableaux d’essences ne notent jamais.
On apprend donc à concevoir l’aération d’hiver avant l’arrosage d’été, et à ne pas planter en automne sur terre lourde, ce qui condamnerait le jeune sujet à passer toute sa phase d’installation dans l’anoxie. Le chapitre de conception, dans la seconde partie, en tirera les clauses. Allez voir le sol en février plutôt qu’en juillet : c’est en février qu’il dit la vérité.
La bande de sol qui décide de tout
Commencez par deux trous. Une bêche suffit, ou la tarière. Creusez plus profond que la motte que vous comptez mettre, et laissez le trou ouvert une journée. Le premier se fait en février, pour voir à quelle profondeur l’eau stationne. Si le jour est sec, les taches rouille sur fond gris le disent aussi bien : elles apparaissent à la hauteur où l’eau monte. Le second se fait en mai, à un pas du premier, rebouché entre-temps. Il montre jusqu’où le sol a déjà séché, c’est-à-dire à partir de quelle profondeur la terre cesse de se mouler entre les doigts. Cette lecture vaut sur terre lourde, et les deux trous doivent être dans la même texture.
Ce qui reste entre les deux, c’est la bande, et c’est elle qui commande tout le reste, bien avant le choix des essences. Eau à cinquante centimètres en février, terre sèche jusqu’à quinze en mai : la bande va de quinze à cinquante, elle fait trente-cinq. On la lit avant de dessiner, et on refait au moins le trou de février à la réception du terrassement, car c’est le sol tel que le chantier l’a laissé qui comptera.
Un seul chiffre sert ici. Le nombre de jours où le sol est sec gagne vingt-quatre jours par an d’ici 2050, trente-neuf d’ici 2100, ce qui donne à peu près un mois de sécheresse en plus dans le nord du pays et deux dans le sud. Dans le même temps, les pluies d’hiver augmentent de quinze à vingt pour cent et celles d’été baissent d’autant. Le sol reçoit plus d’eau, et il en manque plus longtemps.
Le point important n’est pas que l’on ait un hiver plus humide et un été plus sec. C’est que les deux contraintes se suivent, et que cet enchaînement fait plus de mal que chacune prise à part.
Enfoncez la main dans un sol de février sur terre lourde. Les vingt premiers centimètres sont froids et gorgés, et c’est là que le mycélium est le plus dense, même si une part de sa biomasse vit bien plus bas. Soulevez au même moment un paillis posé depuis l’automne. Le feutrage blanc qui tient les brindilles ensemble et qui sent le sous-bois n’est pas le réseau mycorhizien, qui reste invisible, ce sont les champignons de décomposition. Mais ils signent un sol aéré, humide et en activité, et c’est exactement dans ce sol-là que l’autre travaille. Ne rien trouver sous un paillis qui a passé l’hiver est mauvais signe pour les deux. Revenez en mai, la même épaisseur est déjà sèche et poussiéreuse. Cette épaisseur, la plus peuplée, est celle que l’année maltraite deux fois, et c’est en dessous, dans la bande épargnée, que le réseau doit pouvoir se replier. L’hiver détruit une partie du réseau faute d’oxygène. Le printemps est la saison où il devrait se reconstruire, puisque c’est là que la colonisation racinaire repart. Mais si la surface sèche dès avril au lieu de juin, la fenêtre de reconstruction n’existe plus. Le réseau est cassé en février et jamais réparé.
Voilà pourquoi des arbres meurent de sécheresse dans des sols qui reçoivent beaucoup d’eau à l’année. Le cumul pluviométrique annuel n’a jamais rien voulu dire, et il veut encore moins dire quelque chose aujourd’hui.
On ne conçoit plus une plantation contre la sécheresse d’été, on la conçoit autour de la bande de sol qui n’est ni noyée en février ni sèche en mai.
Tout se range derrière. La butte sur terre lourde remonte la bande au-dessus de la nappe d’hiver. La décompaction la recrée là où les engins l’avaient supprimée. Le couvert vivant et le paillage retardent l’assèchement de la surface et allongent la fenêtre de reconstruction du printemps. L’arrosage léger et permanent entretient la bande au lieu de la saturer. Le non-travail du sol ne la détruit pas chaque année. Et le choix des essences se fait sur leur aptitude à changer de métier quand la bande se déplace, ce qui remet les espèces à double abonnement au premier rang, non pour leur goût du sec mais pour leur souplesse.
Deux conseils courants deviennent faux au passage. Arroser davantage l’été répond à la mauvaise saison, puisque le dégât s’est produit en février et que la réparation a échoué en avril. Et drainer sans rien faire d’autre déplace le problème, car un sol drainé chasse l’eau, sèche plus tôt au printemps et raccourcit encore la fenêtre. La butte fait autre chose : elle ne chasse pas l’eau, elle met la racine au-dessus. Ce n’est pas l’eau qu’il faut évacuer, c’est l’air qu’il faut garder.
Il reste à relire les deux trous du début. Si la bande fait quarante centimètres, le site peut porter un arbre. Si elle fait dix centimètres, il faudra la fabriquer. Si elle n’existe pas, aucune essence ne sauvera la plantation et il faut reprendre le terrassement avant de parler de palette végétale.
À suivre
Voilà pour le sol que l’on trouve. La seconde partie parlera de ce que l’on y apporte, l’eau que l’on verse et l’azote que personne n’a décidé. Elle dira pourquoi le réseau est un marché et pas une coopérative. Elle parlera aussi de ce qui travaille dedans sans se montrer, les bactéries que le champignon promène le long de ses hyphes. Et elle finira sur ce qu’un concepteur fait de tout cela, jusqu’au plan de jardin.
D’ici là, une seule chose à faire. Notez dans votre agenda deux trous, l’un en février, l’autre en mai, à un pas du premier.
Petit lexique
Les mots qui méritent une explication, dans l’ordre alphabétique. Certains figurent aussi dans le lexique de l’autre partie, pour que chacune se lise seule.
ADN ancien. Fragments d’ADN conservés dans des sédiments ou des restes anciens, que l’on sait aujourd’hui lire pour savoir quels êtres vivaient là il y a des milliers d’années.
Aérobie. Se dit d’un organisme qui a besoin d’oxygène pour vivre. Les champignons mycorhiziens le sont. Un sol gorgé d’eau les étouffe, l’ectotrophe le premier.
Altération. Lente transformation des roches et des minéraux du sol par l’eau, l’air et les êtres vivants. Un sol ancien est un sol très altéré.
Anoxie, anoxique. Absence d’oxygène. Un sol anoxique est un sol où l’air a été chassé par l’eau, souvent parce qu’il est tassé et saturé.
Arbusculaire (mycorhize). La plus répandue des associations entre racines et champignons, celle de sept espèces de plantes sur dix. Le champignon entre dans les cellules de la racine et n’est jamais visible à l’œil nu. C’est le circuit de presque tout le potager, des fruitiers, de la vigne, de l’olivier, du platane.
Arbuscule. Petite arborescence que le champignon forme à l’intérieur d’une cellule de la racine. C’est le comptoir où se font les échanges, sucres et lipides de la plante contre eau et minéraux du champignon.
Arbutoïde (mycorhize). Association de l’arbousier, de la busserole et de quelques parents. Elle se fait avec les champignons ectomycorhiziens des arbres voisins, et le champignon pénètre en partie dans les cellules de la racine.
Biochar. Charbon végétal obtenu en chauffant du bois ou des résidus végétaux presque sans air. Poreux, il sert d’abri aux champignons et aux bactéries du sol, à condition d’avoir été chargé avant d’être enfoui.
Biofumigation. Technique qui consiste à broyer et enfouir des crucifères, moutarde ou radis, pour que les composés piquants qu’elles libèrent freinent certains parasites et maladies du sol.
Biomasse. Masse totale de matière vivante d’un groupe d’organismes, par exemple de tous les champignons d’un sol.
Biome. Grand ensemble de milieux de même climat et de même végétation à l’échelle du globe, forêt boréale, savane, désert.
Butte. Léger bombement de terre sur lequel on plante en sol lourd, pour mettre les racines au-dessus de l’eau d’hiver.
Champignons de décomposition. Champignons qui vivent de la matière morte, feuilles, bois, paillis. Les spécialistes les disent saprotrophes. Ce sont surtout eux qui forment le feutrage blanc visible sous un paillis. Le réseau arbusculaire, lui, reste invisible.
Charger (un biochar). Laisser le biochar se remplir d’eau, d’éléments nutritifs et de vie avant de l’enfouir. Un biochar brut, enfoui sec, commence par prendre au sol ce qu’on attend de lui qu’il donne.
Charpentières. Les grosses branches maîtresses qui partent du tronc et portent la couronne d’un arbre. Sous terre, on parle aussi de racines charpentières, les grosses racines qui ancrent l’arbre.
Chénopodes. Famille de la betterave, de l’épinard, de la blette et du quinoa, aujourd’hui rangée dans les Amaranthacées. La plupart ne forment pas de mycorhize.
Chevelu racinaire. L’ensemble des racines les plus fines d’une plante, celles qui explorent le sol et absorbent.
Colonisation (mycorhizienne). Part de la longueur des racines effectivement occupée par le champignon. On la mesure au microscope, après avoir coloré les racines.
Compactage, tassement. Écrasement du sol par des engins ou des passages répétés. Ses vides se ferment, et l’air et l’eau ne circulent plus.
Cortex (de la racine). La couche de cellules située sous la peau de la racine, entre la surface et le cœur conducteur. C’est là que travaillent les champignons.
Couvert végétal. Plantes semées ou laissées pour couvrir le sol entre deux cultures ou au pied des arbres. Un couvert d’interculture occupe le sol, souvent l’hiver, entre deux cultures.
Crucifères. Famille des choux, du navet, du radis, de la roquette, de la moutarde et du colza, aujourd’hui appelée Brassicacées. La plupart ne forment pas de mycorhize.
Cultivar. Variété cultivée, sélectionnée par l’homme.
Dalle ferrique. Couche durcie par le fer accumulé en profondeur d’un podzol. Les racines et l’eau la traversent mal.
Décompaction. Travail qui consiste à ameublir en profondeur un sol tassé par des engins, pour y faire revenir l’air.
Désacclimater. Pour une plante, perdre la résistance au froid qu’elle avait gagnée à l’automne, souvent à la faveur d’un redoux.
Deutérium, eau deutérée. Eau dont une partie de l’hydrogène est remplacée par une forme plus lourde, le deutérium. On s’en sert comme traceur pour suivre le trajet de l’eau.
Double abonnement. Expression de l’auteur pour les plantes capables de porter à la fois la mycorhize arbusculaire et l’ectomycorhize, comme le saule, le peuplier, l’aulne ou le frêne. Les chercheurs parlent de double mycorhization.
Ectomycorhize, mycorhize ectotrophe. Association où le champignon enveloppe l’extrémité des racines d’un manchon et s’insinue entre les cellules sans y entrer. C’est le circuit de la plupart des arbres des forêts tempérées et boréales, chêne, hêtre, pin, et celui des champignons que l’on ramasse, cèpe, girolle, truffe.
Engorgement. État d’un sol dont tous les vides sont pleins d’eau, si bien que l’air ne circule plus.
Éricoïde (mycorhize). Association propre aux bruyères, callunes, myrtilles et rhododendrons. Ses champignons savent tirer l’azote d’une matière organique acide et mal décomposée, que les autres mycorhizes exploitent mal.
Fixation de l’azote. Capacité de certaines bactéries à capter l’azote de l’air et à le transformer en ammoniac, que la plante hôte utilise. Chez les légumineuses et l’aulne, elles le font dans des nodules des racines.
Frankia. Bactérie filamenteuse qui fixe l’azote de l’air dans les nodules de l’aulne et de quelques autres arbres et arbustes qui ne sont pas des légumineuses.
Fumure. L’ensemble des apports d’engrais ou d’amendements faits à une culture. Un plan de fumure en fixe les quantités.
Généralistes (champignons). Champignons peu exigeants sur leur partenaire et tolérants aux perturbations, tassement, chaleur, sel. Ce sont eux qui dominent sous les arbres de rue.
Gloméromycètes. Le groupe de champignons qui forme la mycorhize arbusculaire. Ils ne fructifient pas et ne vivent qu’associés à une racine.
Glucosinolates. Composés soufrés présents surtout chez les crucifères, mais aussi chez la capucine ou le papayer. En se dégradant, ils libèrent les isothiocyanates, ce qui pique dans la moutarde et le raifort.
Holocène. La période géologique actuelle, qui a commencé il y a environ onze mille sept cents ans, à la fin de la dernière glaciation.
Horizon (de sol). Couche d’un sol qui se distingue de ses voisines par sa couleur, sa texture ou sa structure, et que l’on voit sur la paroi d’un trou.
Humus. La matière organique du sol transformée par les êtres vivants, sombre et stable. On distingue plusieurs formes d’humus selon l’activité du sol.
Hyphe. Filament microscopique qui constitue le corps d’un champignon, de deux à dix millièmes de millimètre d’épaisseur.
Inoculation, inoculum. L’inoculation est l’apport délibéré d’organismes vivants, champignons ou bactéries, au sol, à une plante ou à un support comme le biochar. L’inoculum est ce que l’on apporte, produit du commerce ou terre prélevée sous une plante saine.
Isothiocyanates. Composés piquants libérés par les crucifères quand leurs tissus se dégradent. Ils gênent la germination des spores de champignons.
Isotope. Version d’un même élément chimique qui ne diffère que par son poids. L’azote existe ainsi en version légère et en version lourde, et leur proportion dans une feuille garde la trace du chemin qu’a pris l’azote.
Jachère longue (trouble de la). Trouble d’une culture qui reste naine et carencée après une longue période sans plante hôte, alors que le sol est correctement pourvu. Le réseau de champignons s’est éteint pendant la jachère.
Légumineuses. Famille du pois, du haricot, de la fève, du trèfle, de la luzerne, de la vesce et du robinier. La plupart logent dans leurs nodules des bactéries qui fixent l’azote de l’air.
Litière. Couche de feuilles mortes, d’aiguilles et de débris végétaux qui couvre le sol, surtout en forêt.
Méta-analyse. Synthèse statistique de tous les essais publiés sur une question, quand ils se prêtent à la comparaison. Elle donne un ordre de grandeur plus solide qu’un essai isolé.
Minéraliser. Décomposer la matière organique jusqu’aux éléments simples, azote, phosphore, que la racine peut absorber.
Mixotrophie, mixotrophe. Se dit d’une plante verte qui fabrique une partie de son sucre et prend le reste au réseau des champignons.
Monotrope. Petite plante blanche des pinèdes, sans chlorophylle, qui vit entièrement du réseau des champignons de l’arbre voisin.
Mycélium. L’ensemble des filaments d’un champignon, un lacis qui court dans le sol. Celui des champignons arbusculaires est invisible à l’œil nu.
Mycorhize. Association entre une racine et un champignon du sol. La plante donne des sucres, et des lipides dans le cas arbusculaire. Le champignon rapporte de l’eau et des minéraux qu’il va chercher là où la racine ne passe pas.
Mycorhizogène (potentiel). Capacité d’un sol à coloniser les racines d’une plante test, autrement dit la quantité de champignons encore capables de repartir.
Nitrate. Forme d’azote soluble que les plantes absorbent directement. C’est l’une des formes des engrais azotés, et celle que l’on retrouve dans l’eau des nappes.
Nodule. Excroissance des racines où logent des bactéries fixatrices d’azote. Petite boule chez les légumineuses, amas en forme de corail chez l’aulne. La nodulation est la formation de ces nodules.
Orchidées (mycorhize des). Association où le champignon nourrit la graine d’orchidée, dépourvue de réserves, pendant sa germination. Sans lui, elle ne germe pas.
Paillis. Couche de matière organique, broyat, feuilles, paille, étalée à la surface du sol pour le couvrir et le protéger.
Phase d’établissement. Les premières années qui suivent une plantation, pendant lesquelles le sujet installe ses racines et son réseau. On la compte généralement sur trois ans.
Phosphore soluble. Le phosphore des engrais qui se dissout tout de suite dans l’eau du sol. Servi en abondance, il dispense la plante de nourrir son champignon, qu’elle renvoie.
Phylogénie. Arbre de parenté entre les espèces, reconstitué à partir de leur ADN.
Plante hôte, non-hôte. Une plante hôte est capable de loger un champignon mycorhizien. Une non-hôte, comme le chou, ne le peut pas.
Plante relais. Plante hôte laissée en place entre deux cultures, trèfle, luzerne, graminée, pour que le réseau des champignons ne s’éteigne pas faute de racine vivante.
Plantes vasculaires. Les plantes qui possèdent des vaisseaux pour conduire la sève, fougères, conifères et plantes à fleurs. Les mousses n’en font pas partie.
Podzol, podzolisation. Sol lessivé, gris et acide en surface, rouillé en dessous là où le fer est descendu. La podzolisation, qui le forme, est très lente et ne se défait pas.
Poils absorbants. Excroissances microscopiques de la peau des jeunes racines, qui multiplient leur surface de contact avec la terre.
Propagules. Tout ce qui permet au champignon de repartir, spores, fragments de filaments et morceaux de racines déjà colonisées.
Racines protéoïdes. Grappes de radicelles très serrées, comme une brosse, que forment le lupin blanc ou les protéacées pour libérer le phosphore du sol sans l’aide d’un champignon.
Radicelles. Petites racines fines issues des racines principales.
Ressuyer. Pour un sol, se débarrasser de son excès d’eau après une forte pluie.
Rhizobium. Bactérie du sol qui s’installe dans les nodules des légumineuses et y fixe l’azote de l’air.
Semis direct. Semis fait sans labour ni travail du sol, directement dans les résidus de la culture ou du couvert précédent.
Spore. Cellule de reproduction d’un champignon, qui peut attendre dans le sol avant de germer au contact d’une racine.
Stomates. Petites ouvertures de la feuille par où entre le gaz carbonique et sort la vapeur d’eau.
Symbiose, symbiote. Association durable entre deux êtres vivants différents, où chacun trouve son compte. Les symbiotes sont les partenaires de cette association.
Taches rouille. Marques orange ou rouges sur fond gris dans un sol, laissées par le fer quand l’eau stagne puis se retire. Elles disent jusqu’où l’eau monte en hiver, même un jour sec.
Tardiglaciaire. La fin de la dernière glaciation, entre environ quinze mille et onze mille sept cents ans avant aujourd’hui.
Tarière. Grande vrille à main que l’on enfonce dans le sol pour en remonter une carotte de terre et lire ses couches.
Terre lourde. Sol riche en argile ou en limon fin, qui garde l’eau et se tasse facilement.
Texture (du sol). Proportion de sable, de limon et d’argile d’un sol. Elle commande sa façon de garder l’eau et l’air.
Transpiration. Eau que la plante perd par ses feuilles et qu’elle remplace en puisant dans le sol.
Pour aller vérifier
Brundrett M. et Tedersoo L., 2018, New Phytologist 220 : 1108-1115, répartition mondiale des types de mycorhizes.
Steidinger B. et coll., 2019, Nature 569 : 404-408, contrôle climatique de la décomposition et biogéographie mondiale des symbioses forestières.
Teste F., Jones M. et Dickie I., 2019, New Phytologist 225 : 1835-1851, les plantes à double mycorhization, recensement, écologie et bascule entre circuits.
Rog I., Lerner D., Bender S. et van der Heijden M., 2025, Ecology Letters 28 : e70132, aire environnementale élargie des ligneux à double mycorhization.
Read D. et Perez-Moreno J., 2003, New Phytologist 157 : 475-492, mycorhizes et cycles des éléments selon les écosystèmes.
Von Hippel B. et coll., 2025, Science Advances 11 : eadj5527, paléométagénomique du lac Lama, altération, cycles et podzolisation sur vingt-trois mille ans.
Michaud T. et coll., 2024, New Phytologist 242 : 1717-1724, herbiers du Minnesota 1871-2016, déclin du statut azoté et effacement de la signature ectotrophe.
Chen Q. et coll., 2025, Journal of Ecology 113 : 1150-1163, le statut mycorhizien commande le δ15N foliaire à l’échelle mondiale.
Guide d’identification et de délimitation des sols des zones humides, ministère chargé de l’écologie, avril 2013, lecture des traits rédoxiques et classes d’hydromorphie.
Météo-France, portail DRIAS et DRIAS-Eau, projections de précipitations saisonnières, de débits et de jours de sol sec aux horizons 2050 et 2100.
Bowles T. et coll., 2017, Journal of Applied Ecology 54 : 1785-1793, méta-analyse travail du sol et couverts, 54 essais.
Njeru E. et coll., 2014, Agronomy for Sustainable Development 34, effet des couverts sur la mycorhization de la culture suivante.
Shamshitov A. et coll., 2026, Mycorrhiza 36 : 42, moutarde blanche, travail du sol et colonisation.
Schreiner R. et Koide R., 1993, New Phytologist 123 : 107-113, moutardes, huiles de moutarde et mycorhizes, et 123 : 99-105, composés antifongiques des racines.
Vierheilig H. et coll., 2000, New Phytologist 146 : 343-352, glucosinolates et statut mycorhizien, la limite de l’explication par les isothiocyanates.
Isobe K. et coll., 2014, Plant Production Science 17 : 260-267, effet du couvert d’hiver sur la mycorhization et le rendement du soja.
Higo M. et coll., 2020, Scientific Reports 10 : 6039, séquençage des communautés mycorhiziennes du maïs selon le couvert et le travail du sol.
Dickie I., Koide R. et Fayish A., 2001, New Phytologist 151 : 257-264, colonisation arbusculaire des semis de Quercus rubra, et Dickie I., Koide R. et Steiner K., 2002, Ecological Monographs 72 : 505-521, influence des arbres établis.
Püschel D. et coll., 2020, Mycorrhiza 30 : 299-313, transport d’eau par les hyphes mesuré à l’eau deutérée, contribution faible au regard de la demande.
Khalvati M. et coll., 2005, Plant Biology 7 : 706-712, et Ruth B. et coll., 2011, Plant and Soil 342 : 459-468, quantification du prélèvement d’eau par les hyphes.
Kakouridis A. et coll., 2022, New Phytologist 236 : 210-221, preuve directe du transport d’eau par les champignons mycorhiziens.
Boeraeve M., Honnay O. et Jacquemyn H., 2019, Science of the Total Environment 666 : 703-712, l’aulne glutineux, arbre à double mycorhization, ses champignons arbusculaires et ectotrophes.
Lodge D., 1989, Plant and Soil 117 : 243-253, humidité du sol et colonisation arbusculaire ou ectotrophe chez le peuplier et le saule.
Schenker G., Lenz A., Körner C. et Hoch G., 2014, Tree Physiology 34 : 302-313, températures minimales de croissance racinaire chez sept feuillus européens.
Sosa-Hernández M. et coll., 2019, Frontiers in Microbiology 10 : 744, les champignons arbusculaires du sous-sol, biomasse et communautés en profondeur.
Koziol L., McKenna T. et Bever J., 2025, New Phytologist 246 : 821-827, méta-analyse des inoculants commerciaux.
Yves Nicolas, expert-conseil en écologie fonctionnelle, yvesnicolas.com